들어가기 | 단백질은 왜 접히며, 왜 때로는 구조를 잃는가?
살아 있는 세포에서 새로 합성된 폴리펩타이드 사슬은 펩타이드 결합으로 연결된 일차원 서열이다. 그러나 효소의 활성 부위, 수용체의 결합 표면, 세포골격의 조립 부위는 공간적으로 배열된 원자와 곁사슬을 필요로 한다. 일부 단백질은 스스로 접히지만, 세포 안의 혼잡한 환경에서는 샤페론과 품질 관리 체계가 정확한 접힘과 단백질의 수명을 조절한다.[1][2]
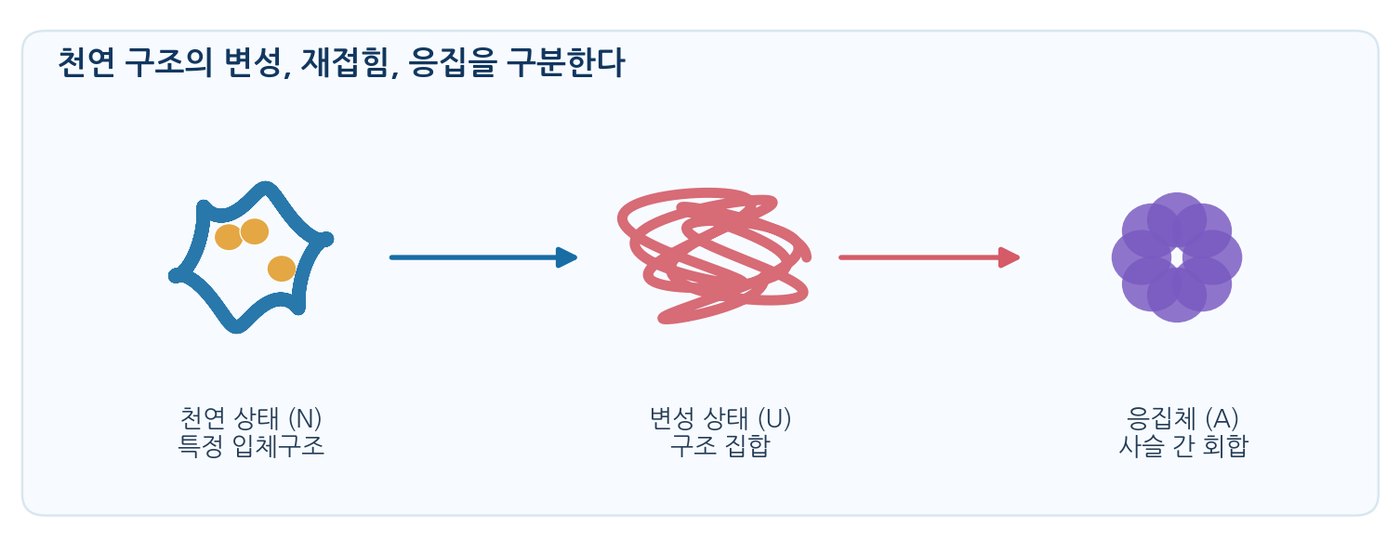
단백질 변성(denaturation)은 일반적으로 2차·3차·4차 구조의 상실이나 재배열을 뜻한다. 대부분의 변성 조건에서 펩타이드 결합을 이루는 1차 구조 자체가 모두 끊어지지는 않는다. 단백질이 펼쳐지더라도 다시 접힐 수 있지만, 불용성 응집체가 생기거나 공유결합이 손상되면 원래 구조와 활성이 회복되지 않을 수도 있다.[3]
4.1 단백질 구조의 상실은 기능 상실을 초래한다
1. 변성은 단백질의 공간적 배열을 바꾼다
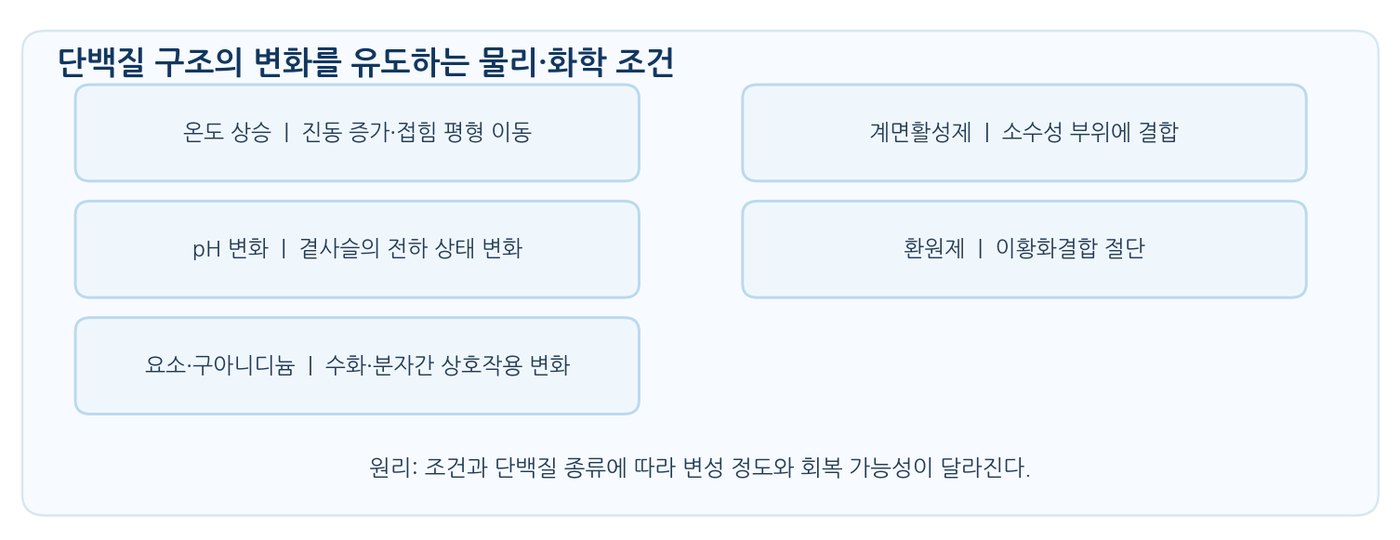
단백질의 구조는 곁사슬의 소수성 효과, 수소결합, 정전기적 상호작용, 반데르발스 접촉 등의 균형으로 유지된다. 온도·pH·염·용매 조건이 달라지면 이 상호작용의 자유에너지 기여가 바뀌어 기존 입체형태가 덜 유리해질 수 있다. 높은 온도가 모든 단백질을 같은 온도에서 변성시키는 것은 아니며, 호열성 생물의 단백질 중에는 높은 온도에 적응한 것들도 있다.
효소가 변성되면 촉매에 필요한 입체배열과 기질 결합 부위가 변하여 활성이 떨어질 수 있다. 그러나 모든 구조 변화가 곧 완전한 기능 상실은 아니다. 단백질은 정상적인 작동 과정에서도 필요한 구조 변화를 일으키고, 일부 무질서 단백질은 고정된 하나의 구조 없이 기능한다.
2. 가역적 변성과 비가역적 응집을 구분한다
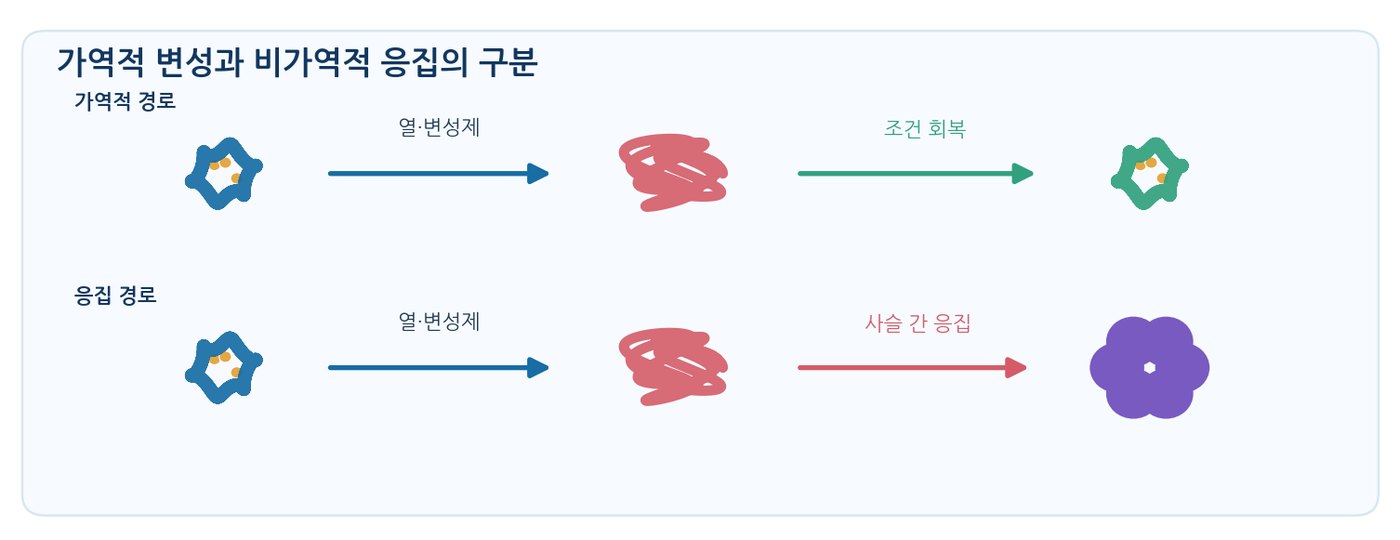
변성 조건을 원상 복귀시켰을 때 단백질이 정상 구조와 활성을 회복하면 재접힘(renaturation, refolding)이 일어났다고 해석할 수 있다. 반면 변성된 사슬의 소수성 부위들이 서로 결합하면 응집체를 형성해 원래 구조로 돌아가기 어려워질 수 있다. 삶은 달걀흰자가 불투명하고 단단해지는 현상은 가열에 따른 단백질 구조 변화와 응집·겔화가 함께 관여한 결과다.[3]
3. 변성과 단백질 분해는 동일한 현상이 아니다
가수분해효소가 펩타이드 결합을 절단하면 아미노산 서열의 연결 자체가 바뀌므로 단백질 분해(proteolysis)에 해당한다. 단백질이 펼쳐지는 변성은 이와 별개의 변화다. 다만 변성으로 펩타이드 결합이 효소에 더 잘 노출되면 단백질 분해가 촉진될 수 있다.
4.2 아미노산 서열이 3차 구조를 결정한다
1. 안핀센의 리보뉴클레이스 A 실험
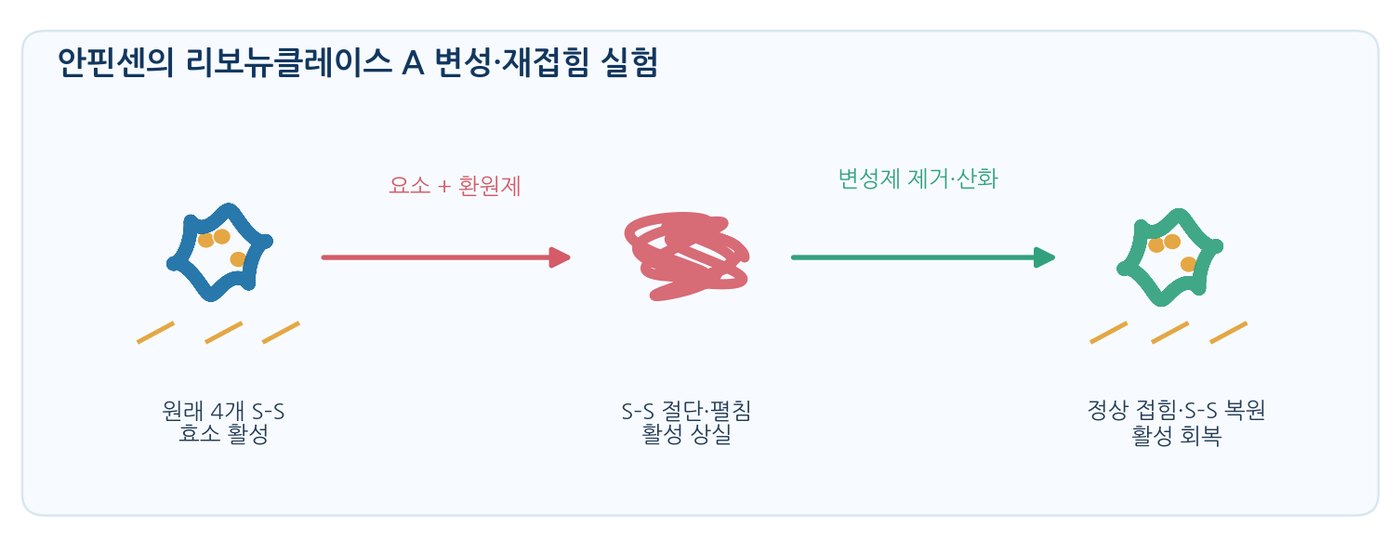
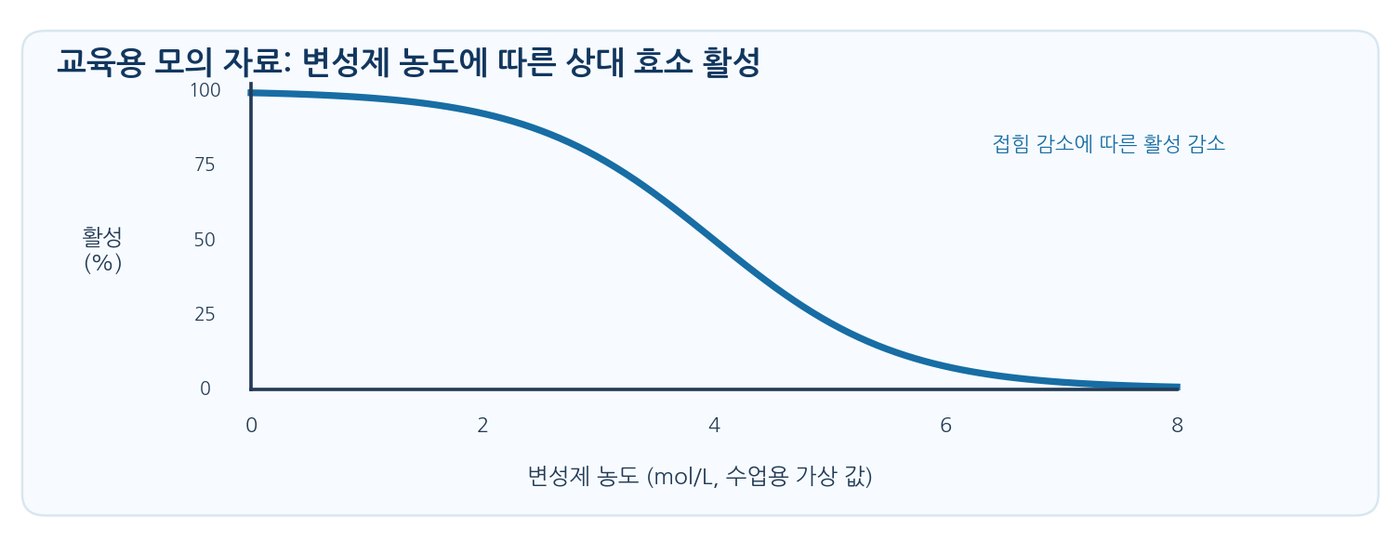
크리스천 안핀센(Christian B. Anfinsen)은 RNase A의 변성과 재접힘을 연구하여 특정 환경에서 단백질이 본래의 서열 정보에 따라 정상 구조와 활성을 되찾을 수 있음을 보였다. RNase A는 124개의 아미노산 잔기와 4개의 이황화결합을 가진 효소다. 요소와 β-머캅토에탄올을 이용해 비공유 상호작용과 이황화결합을 약화시키면 펼친 상태로 변하고 활성이 사라진다. 이후 변성제와 환원제를 제거하고 적절한 산화 조건을 제공하면 원래의 접힘 및 효소 활성이 회복될 수 있다.[4]
이 실험은 아미노산 서열이 접힘에 필요한 핵심 정보를 제공한다는 사실을 지지한다. 다만 “서열만 알면 어떤 환경에서나 항상 하나의 구조로 정확하게 접힌다”는 뜻은 아니다. 용매, pH, 온도, 막 환경, 리간드, 번역 후 변형, 샤페론의 작용도 관찰되는 구조와 접힘 결과에 영향을 준다. 세포 안에서는 접힘이 번역과 동시에 시작되거나 다른 단백질의 도움을 받기도 한다.[1]
2. 이황화결합의 가능한 배치 수를 계산한다
RNase A의 8개 시스테인이 서로 겹치지 않는 4개 쌍을 만든다고 가정하면, 가능한 짝짓기는 7×5×3×1 = 105가지다. 그러나 이 중 정상 효소의 기능을 구현하는 결합 배치는 제한적이다. 이는 아미노산 서열과 주변 조건이 이황화결합의 올바른 재배열에 영향을 준다는 사실을 생각하게 하는 계산이다. 가능한 105종이 실제로 모두 동일한 비율로 형성된다는 뜻은 아니다.
3. 열역학적으로 유리한 접힘과 자유에너지 차이
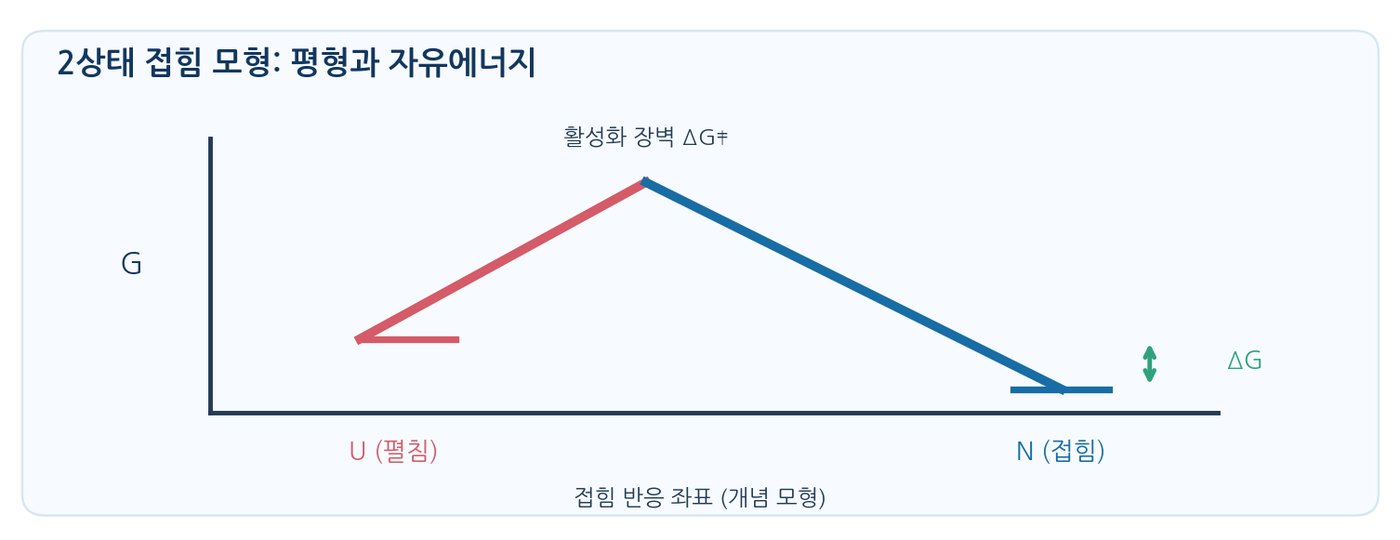
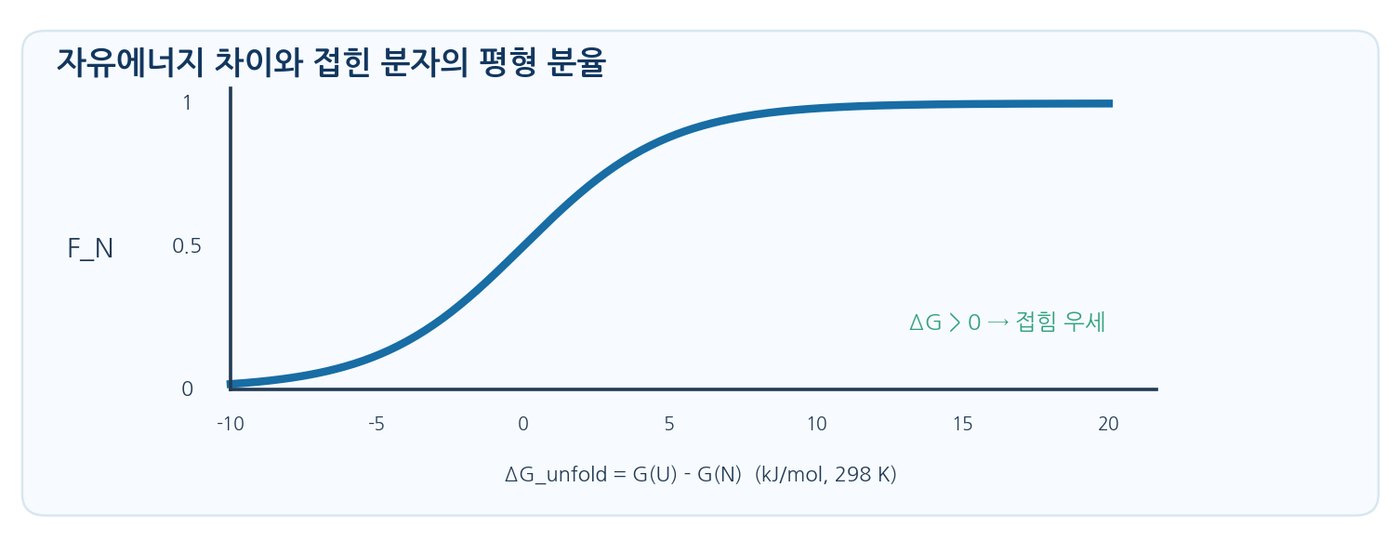
두 상태 모형에서는 펼친 상태 U와 접힌 상태 N 사이에 U ⇌ N 평형이 성립한다고 본다. 다음 식에서 접힘 안정성을 나타내는 ΔG_unfold는 ‘접힌 상태 N에서 펼친 상태 U로 이동할 때의 표준 자유에너지 차이’로 정의한다. 이 정의에 따라 ΔG_unfold > 0이면 N이 유리하고, ΔG_unfold < 0이면 U가 유리하다. 여러 접힘 상태와 응집이 중요한 실제 단백질에는 단순한 두 상태 모형이 그대로 적용되지 않을 수 있다.
여기서 R = 8.314 J·mol⁻¹·K⁻¹이며, T는 절대온도(K)다. 예를 들어 298 K에서 ΔG_unfold = +5.0 kJ/mol이면 K_U = e^(−5000/(8.314×298)) ≈ 0.133이고, F_N ≈ 0.883이다. 이 수치는 모형 조건에서 약 88.3%의 분자가 접힌 상태에 있다는 뜻이다.
4.3 폴리펩타이드는 여러 경로를 통해 빠르게 접힐 수 있다
1. 레빈탈의 역설: 무작위로 모든 구조를 시도하지 않는다
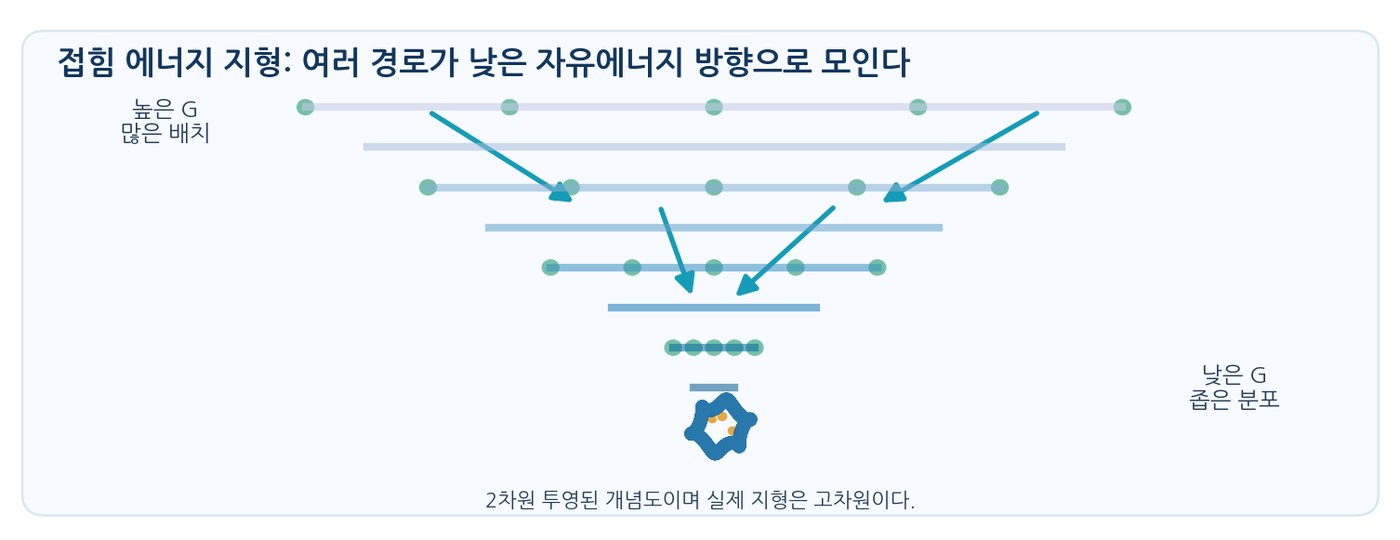
사슬의 이면각이 가질 수 있는 조합은 매우 많다. 만약 단백질이 가능한 모든 입체형태를 하나씩 무작위로 검사한다면 생리적으로 허용되는 시간 내에 정상 구조를 얻기 어렵다. 그러나 많은 단백질은 마이크로초부터 초 단위 등 다양한 시간 척도에서 접힐 수 있다. 단백질은 모든 상태를 동일한 확률로 탐색하지 않으며, 국소 상호작용과 자유에너지 지형이 접힘 경로를 제한한다.[5]
2. 접힘 에너지 지형과 여러 미시 경로
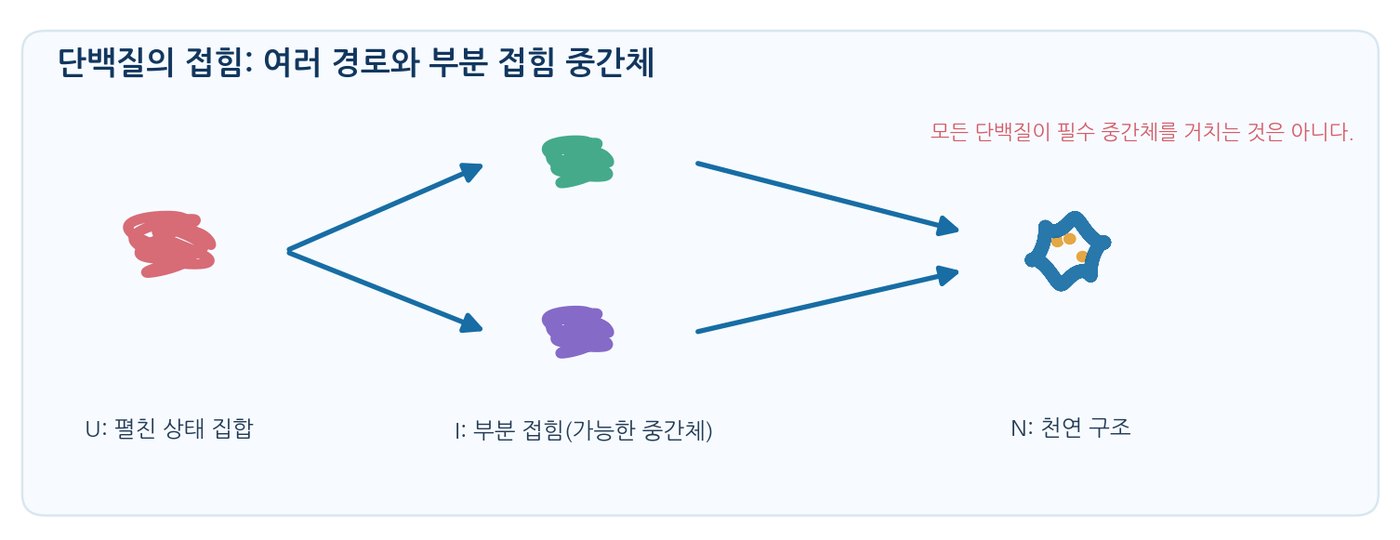
접힘 깔때기(folding funnel)는 많은 펼친 구조 집합에서 상대적으로 적은 낮은 자유에너지의 구조 집합으로 진행되는 경향을 나타내는 개념 모형이다. 깔때기는 단일 고정 경로를 의미하지 않는다. 여러 경로와 부분 접힘 중간체가 존재할 수 있고, 일부 단백질은 중간체가 뚜렷하지 않은 두 상태 접힘도 보인다. 특정 중간체에 오래 머무는 현상은 접힘의 운동학적 장벽을 반영한다.[5]
3. 열역학적 안정성과 접힘 속도의 구분
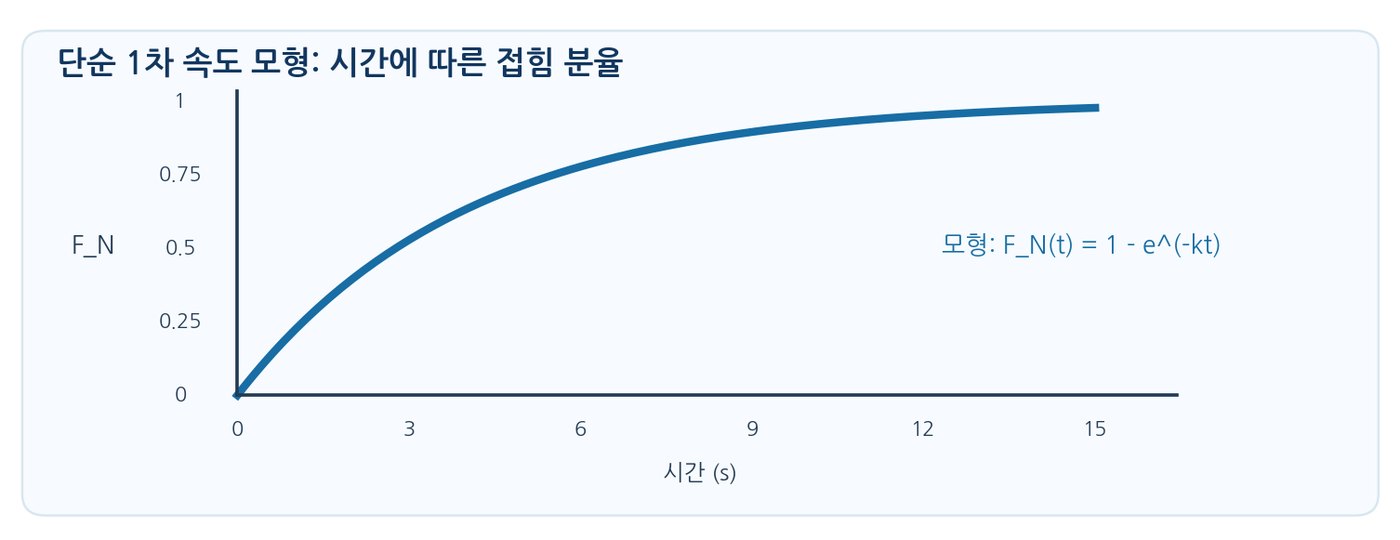
평형분율은 접힘·펼침 상태의 상대적 자유에너지에 따라 결정되지만, 그 평형에 도달하는 속도는 경로의 장벽과 속도상수의 영향을 받는다. 따라서 더 안정한 단백질이 반드시 더 빨리 접히는 것은 아니다. 접힘 속도를 설명하는 교육용의 단순한 모형으로 F_N(t) = 1 − e^(−kt)를 사용할 수 있다. 이 식은 재펼침을 무시하고 처음에는 모두 펼쳐진 분자가 일방향으로 접혀 가는 제한적 조건의 모형이다.
예를 들어 k = 0.25 s⁻¹이라면 t₁/₂ = 0.693/0.25 = 2.77 s이고, 4초에서 F_N = 1 − e⁻¹ ≈ 0.632가 된다. 실제 접힘에서는 중간체, 역반응, 응집, 분자 간 상호작용을 고려해야 한다.
4. 변성 온도 T_m과 접힘의 평형
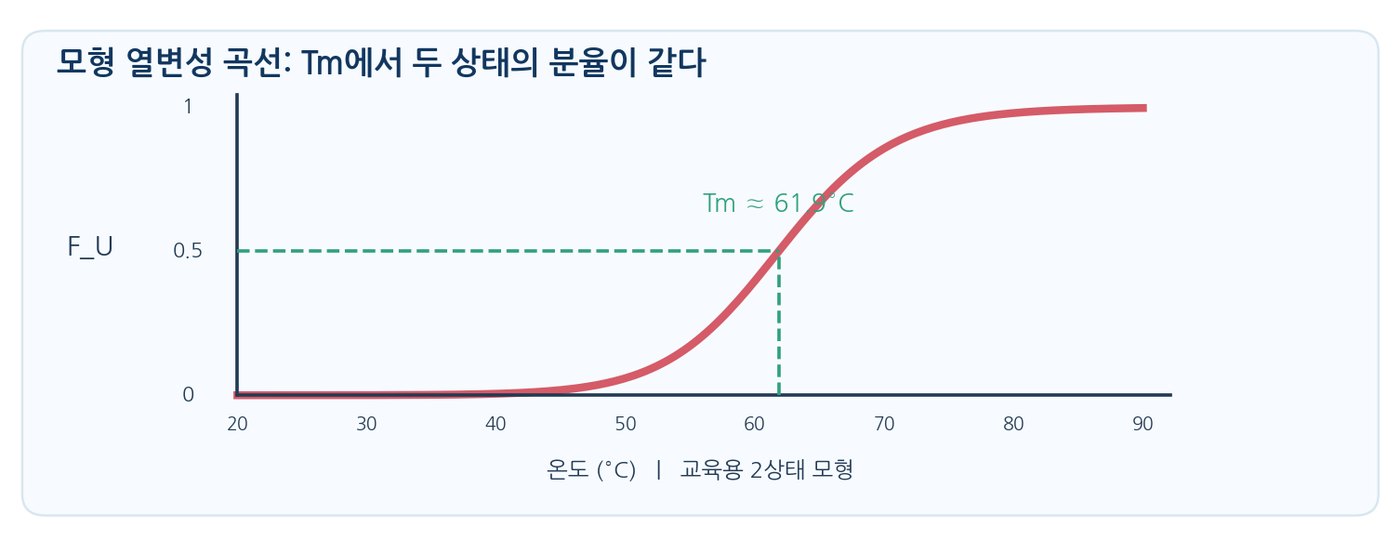
열에 의해 접힌 분자 비율이 감소하는 단순 2상태 평형에서 T_m은 F_N = F_U = 0.5가 되는 온도다. 따라서 해당 조건에서 ΔG_unfold(T_m) = 0이 된다. 실제 단백질의 열변성에는 농도 의존적 응집이나 비가역적 반응이 섞일 수 있고, 이 경우 관찰한 곡선의 중간점을 곧바로 평형 T_m으로 취급할 수 없다.
4.4 몇 가지 단백질은 도움을 받아 접힌다
1. 분자 샤페론은 잘못된 사슬 간 결합을 줄인다
분자 샤페론(molecular chaperone)은 폴리펩타이드가 접히는 과정에서 노출된 소수성 구간에 결합하거나 격리된 공간을 제공하여 비정상적인 사슬 간 회합을 줄일 수 있다. 샤페론은 최종 아미노산 서열을 새로 만들어 주지 않으며, 일반적으로 정상 구조에 대한 정보를 대체하지 않는다. 세포의 접힘은 스스로 일어나는 경우와 샤페론의 도움을 받는 경우가 함께 존재한다.[1][2]
2. Hsp70과 Hsp60/샤페로닌의 작동 원리는 다르다
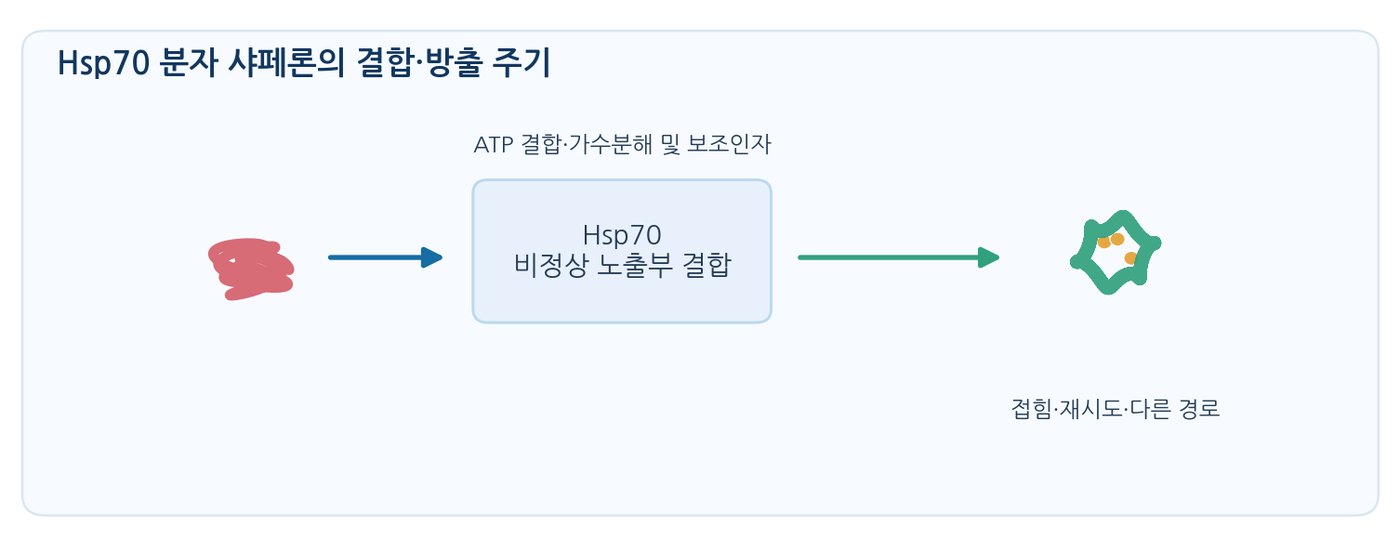
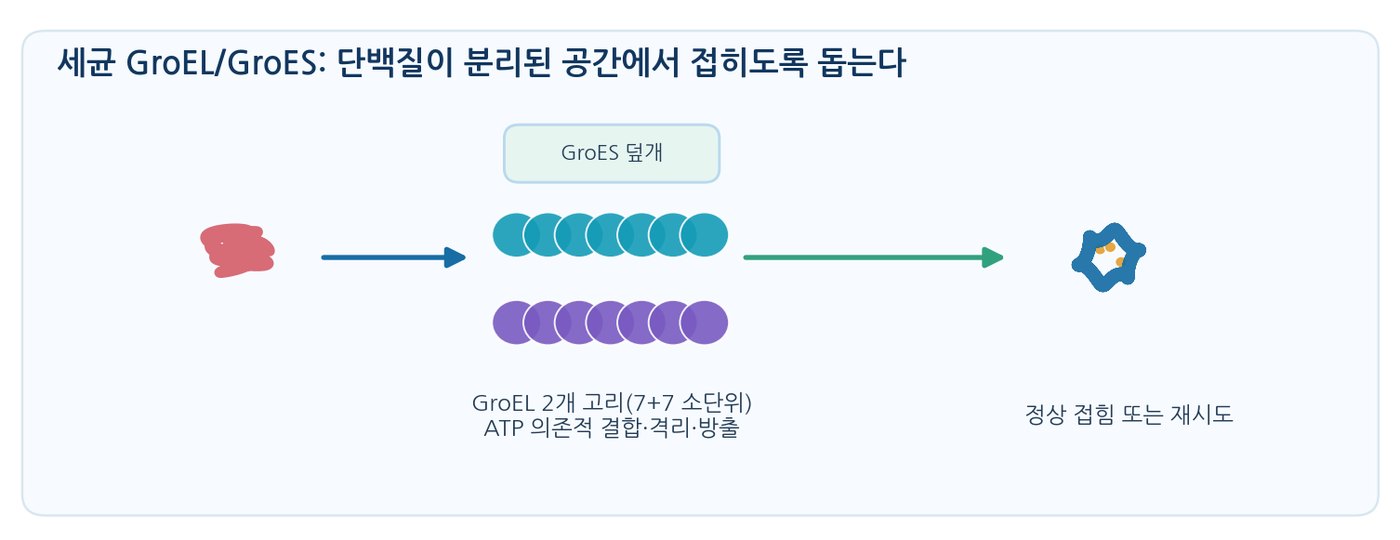
Hsp70 계열은 번역 중이거나 부분적으로 접힌 사슬의 짧은 소수성 구간에 결합하고 ATP-ADP 순환을 이용해 결합과 방출을 조절한다. 세균의 GroEL/GroES는 GroEL의 두 고리(각 7개 소단위)와 GroES 덮개로 이루어지는 ATP 의존적 샤페로닌 체계로, 접힘 과정에서 사슬의 다른 분자와의 원치 않는 상호작용을 줄이는 공간을 제공한다. 진핵세포의 세포질과 미토콘드리아·소포체에도 각각 특화된 샤페론이 존재한다.[1]
3. 접힘에 영향을 주는 보조 효소도 있다
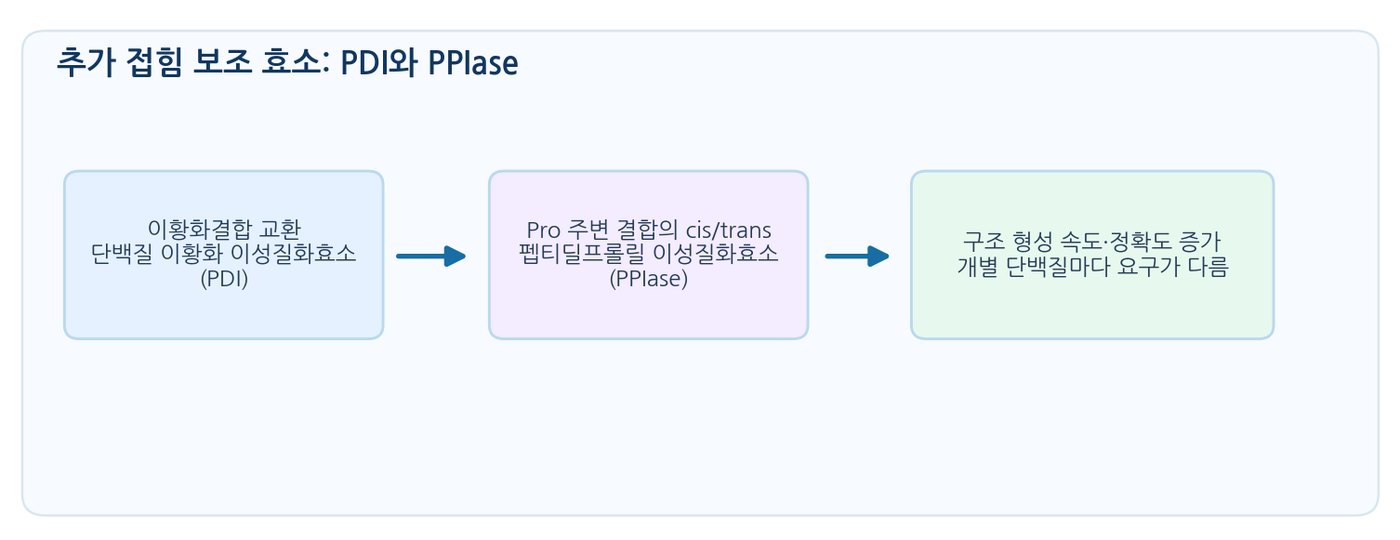
소포체에서는 단백질 이황화 이성질화효소(PDI)가 이황화결합의 형성과 교환에 관여한다. 펩티딜프롤릴 이성질화효소(PPIase)는 프롤린 주변 펩타이드 결합의 cis/trans 이성질화를 촉진해 일부 단백질의 접힘을 빠르게 한다. 이들 효소는 모든 단백질이 필요로 하는 보편적 단계가 아니라 특정 단백질의 접힘 병목을 줄이는 역할을 한다.
4. 단백질 품질 관리는 재접힘과 제거를 모두 포함한다
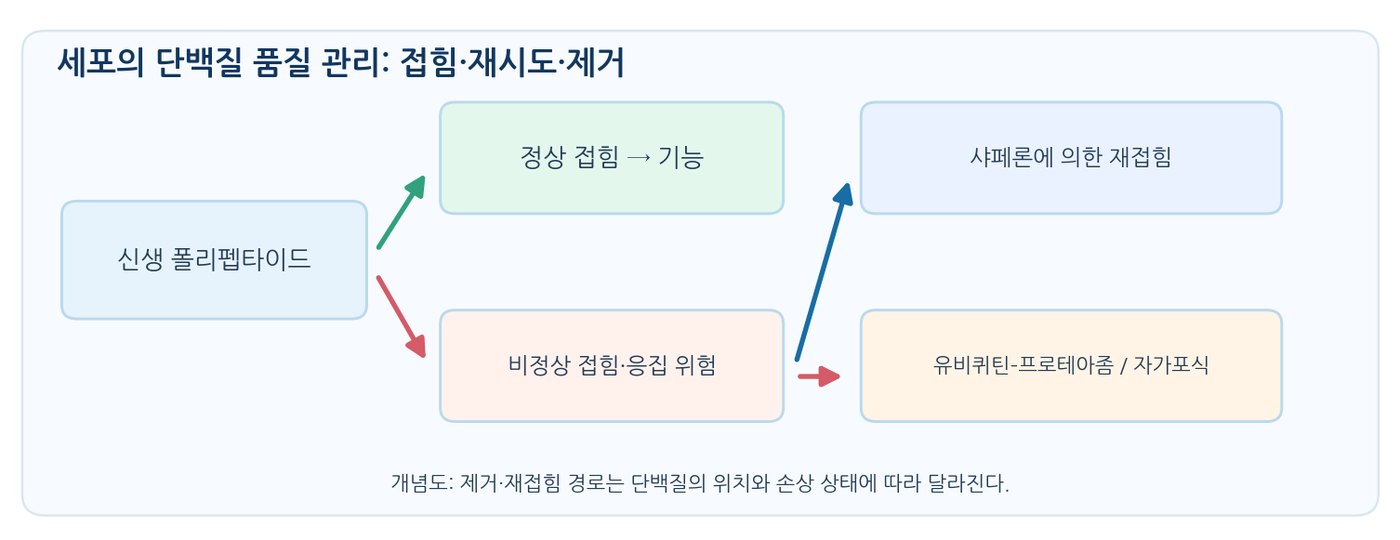
세포는 정상 구조를 이루지 못한 단백질을 재접힘시키거나 분해하여 품질을 관리한다. 일부 변성·오접힘 단백질은 유비퀴틴 표지를 받아 프로테아좀에 의해 분해되며, 크거나 응집된 단백질은 자가포식–리소좀 경로가 중요할 수 있다. 소포체에서는 접힘 이상을 감지해 소포체 스트레스 반응과 미접힘 단백질 반응(UPR)이 활성화되기도 한다. 이런 전체 체계를 단백질 항상성(proteostasis)이라 한다.[2]
4.5 단백질 접힘의 결함은 유전질환과 여러 질환의 분자적 기전이 될 수 있다
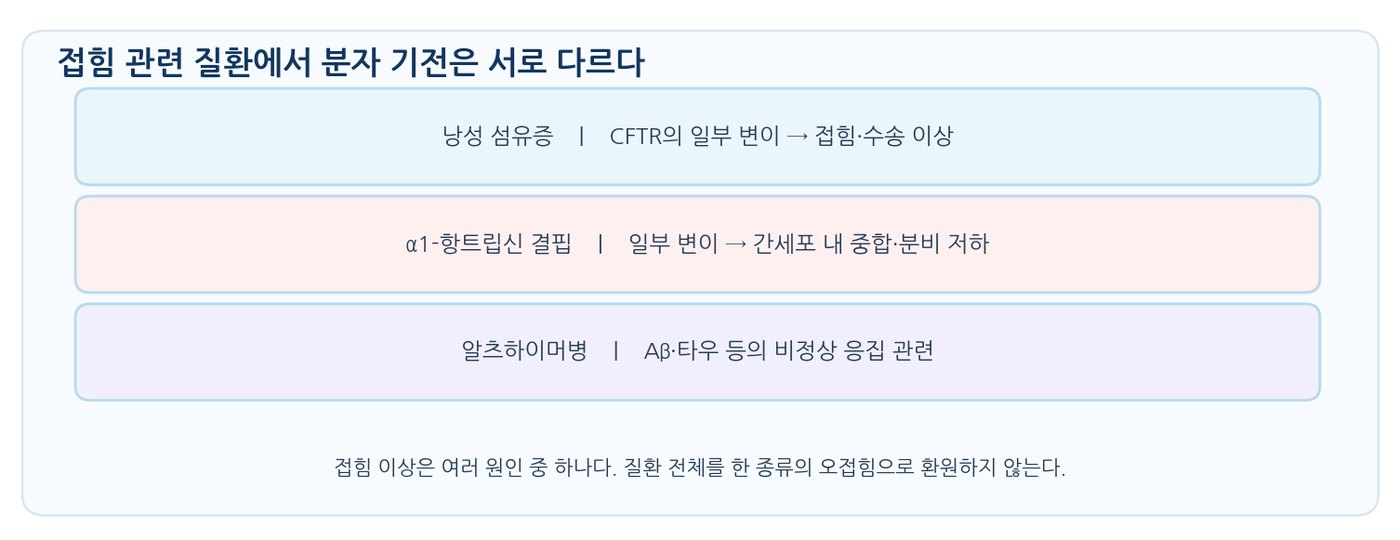
1. 낭성 섬유증: CFTR 단백질의 접힘과 세포막 수송
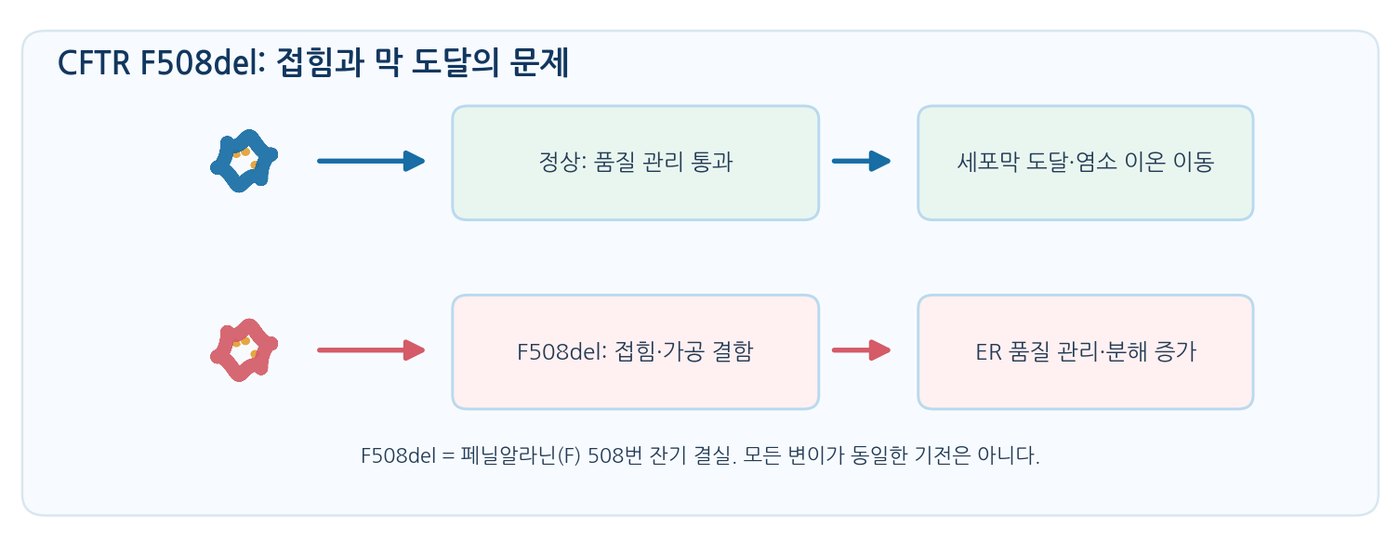
CFTR은 상피세포막에서 염소 이온 및 중탄산염 이동에 관여하는 통로 단백질이다. 낭성 섬유증의 일부 변이, 특히 F508del은 페닐알라닌 508번 잔기의 결실과 관련되어 접힘·가공 문제를 일으키며, 그 결과 많은 단백질이 세포막에 도달하지 못하고 세포 내 품질 관리 과정에서 제거될 수 있다. 그러나 모든 CFTR 변이가 같은 기전으로 작용하는 것은 아니다.[6]
2. 오접힘이 언제나 동일한 질병 경로를 만드는 것은 아니다
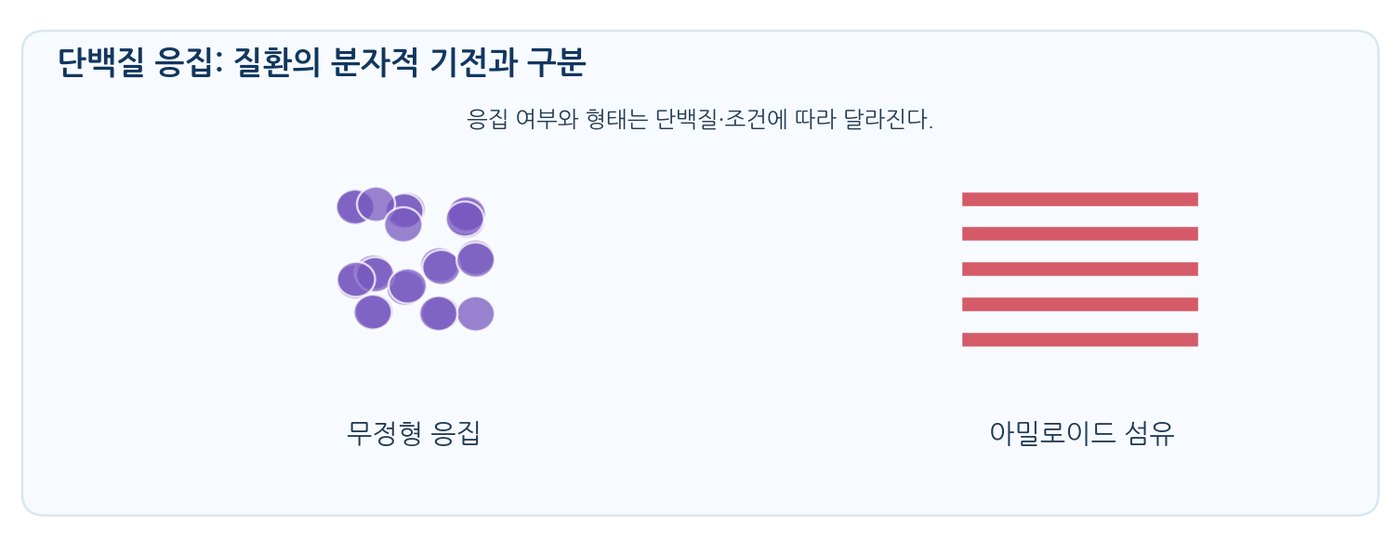
α1-항트립신의 일부 변이는 비정상적 중합과 세포 내 축적을 유발해 간·폐 질환과 연결될 수 있다. 알츠하이머병에는 아밀로이드-β와 타우 단백질의 비정상적인 응집이 연관되어 있으나 질병의 발생과 진행을 단백질 응집 하나로만 설명하기는 어렵다. 원인이 되는 유전자·단백질, 독성 작용의 위치, 치료 전략은 질환에 따라 다르다.
[별도설명 4-6] 잘못된 단백질 접힘에 의한 죽음: 프리온 병
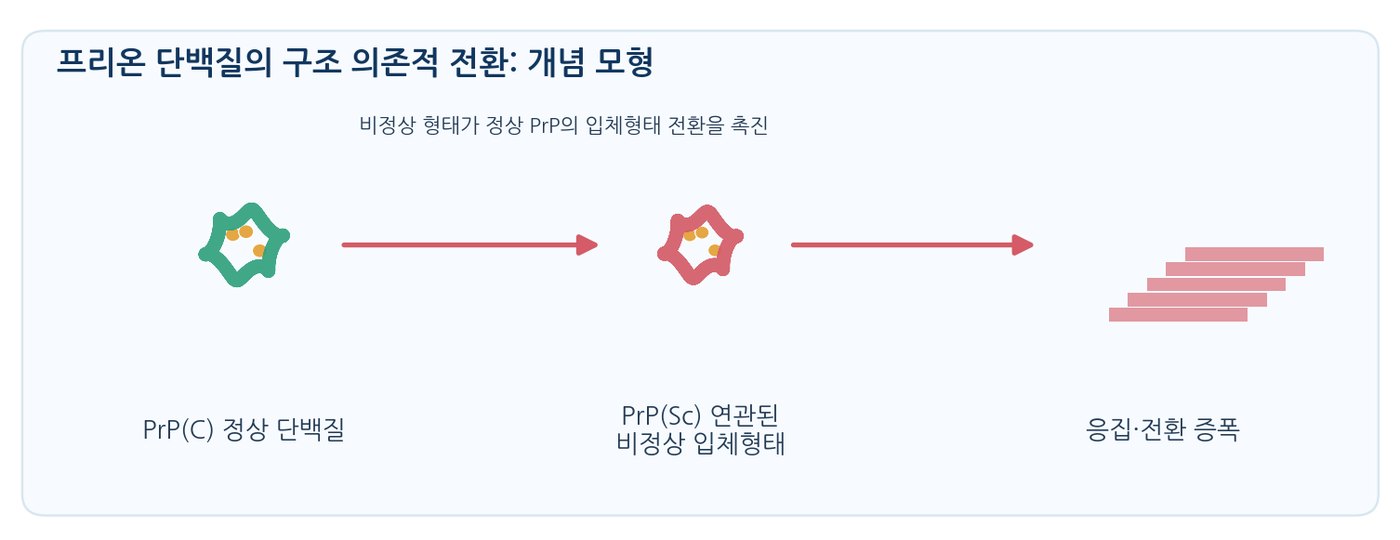
프리온(prion)은 감염성과 연관된 비정상적으로 접힌 단백질 형태를 가리킨다. 정상 세포 프리온 단백질 PrPᶜ는 PRNP 유전자에서 발현된다. 병적 형태인 PrPˢᶜ와 연관된 구조가 정상 PrP의 입체형태 전환을 촉진하면 비정상 단백질의 축적이 증폭될 수 있다. 단백질의 입체구조가 또 다른 단백질의 구조를 바꾸는 이 과정은 일반적인 유전자 복제와 구분되는 특징이다.[7]
인간의 프리온 질환 중 크로이츠펠트–야콥병(CJD)은 빠르게 진행하는 치명적 신경퇴행성 질환이다. 대부분의 사례는 알려진 전파 경로가 없는 산발형이며, 일부는 PRNP 유전자 변이나 매우 드문 의료 관련 노출과 관련된다. 프리온 관련 질환 전체를 일반적인 접촉으로 쉽게 전파되는 질환이라고 설명해서는 안 된다.[7]
4.6 접힘과 변성을 정량적으로 연구한다
1. 어떤 실험 신호가 어떤 현상을 보여 주는가?
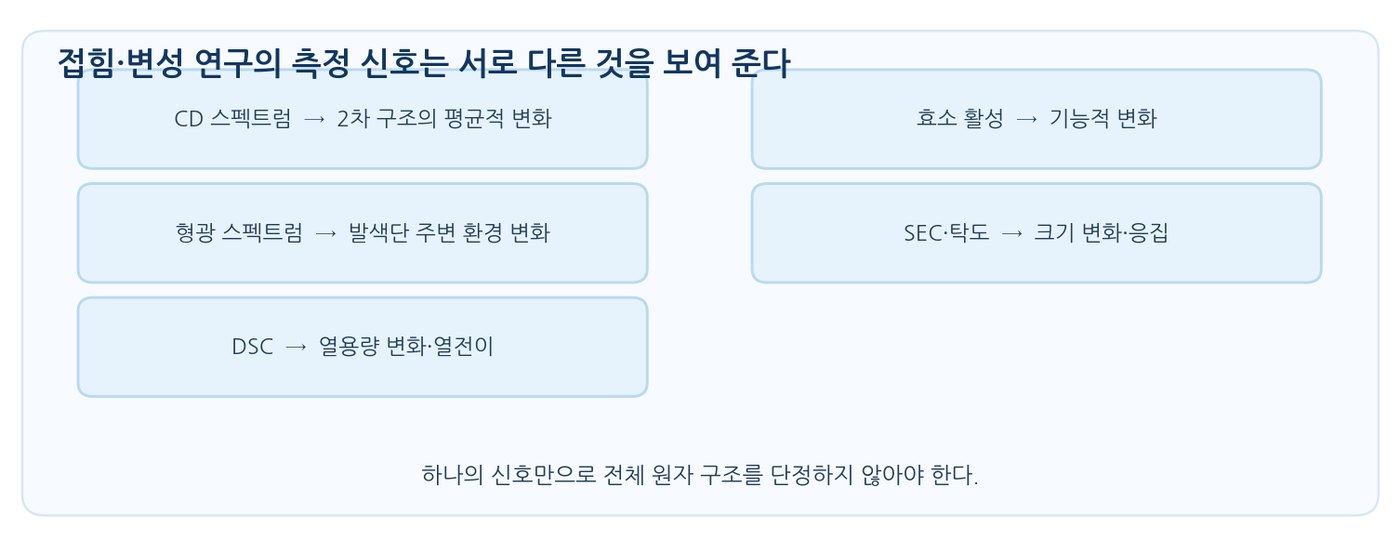
접힘 연구에서 원형이색성(CD)은 평균적인 2차 구조 변화를, 형광 신호는 방향족 잔기와 염료의 주변 환경 변화를, 시차주사열량계(DSC)는 열용량과 열전이의 변화를 알려준다. 효소 활성은 기능 변화를, 크기배제크로마토그래피와 탁도는 입자 크기 및 응집 정보를 제공한다. 이 중 단일 측정 신호만으로 모든 원자 위치를 결정할 수는 없다.
2. 열변성 곡선에서 T_m을 읽는다
이상적인 2상태 평형에서 F_U = 0.5에 해당하는 온도를 T_m이라 한다. 변성 전과 후의 신호가 서로 다르고 두 상태 사이에서 신호가 분율에 선형적으로 비례한다는 가정이 성립할 때만 관찰 신호에서 분율을 계산할 수 있다. 예를 들어 천연 상태 신호가 80, 펼친 상태 신호가 20이며 관찰 신호가 65라면 F_N = (65−20)/(80−20) = 0.75다.
측정된 T_m이 높다고 단백질의 생체 내 반감기가 반드시 길다는 뜻은 아니다. 분해 경로, 단백질 농도, 리간드 결합, 응집 등 여러 변수가 단백질의 수명을 결정한다.
교재 참고 문헌 및 자료 검증 기준
| 변성 요인 | 주된 분자적 영향 | 관찰 가능한 결과 | 주의할 점 |
|---|---|---|---|
| 가열 | 상태 간 자유에너지와 분자 운동 변화 | 활성 감소, 탁도 증가 | 열변성과 응집은 구분해야 함 |
| 강한 pH 변화 | 곁사슬의 이온화·염다리 변화 | 용해도 또는 활성 변화 | 단백질의 pH 최적 조건은 다름 |
| 요소·구아니디늄염 | 단백질·용매 상호작용 재분배 | 접힘 상태 분율 변화 | 농도와 시간의 영향 존재 |
| SDS 등 계면활성제 | 소수성 표면에 결합·구조 붕괴 | SDS-PAGE에서 사슬 분리 | 막단백질은 조건이 다를 수 있음 |
| 환원제 | Cys-Cys 이황화결합 환원 | 특정 단백질의 안정성 감소 | 모든 단백질에 S-S가 있는 것은 아님 |
| ΔG_unfold (kJ/mol) | K_U = [U]/[N] | F_N (298 K) | 해석 |
|---|---|---|---|
| +10.0 | 0.0177 | 0.983 | 접힌 상태 크게 우세 |
| +5.0 | 0.133 | 0.883 | 접힌 상태 우세 |
| 0.0 | 1.000 | 0.500 | 두 상태 같은 분율 |
| −2.5 | 2.742 | 0.267 | 펼친 상태 우세 |
| 구분 | 대표 단백질 | 주요 기능 | ATP 필요성 |
|---|---|---|---|
| Hsp70 계열 | DnaK·Hsp70·BiP | 부분 접힘 사슬의 결합·방출·응집 방지 | 일반적으로 주기 조절에 필요 |
| 샤페로닌 | 세균 GroEL/GroES, 일부 Hsp60 | 격리된 공간에서 접힘 재시도 | 일반적으로 필요 |
| PDI | 단백질 이황화 이성질화효소 | 이황화결합 형성·교환 촉진 | 반응과 재생 체계에 따라 다름 |
| PPIase | 펩티딜프롤릴 이성질화효소 | Pro 인접 펩타이드 결합의 cis/trans 이성질화 | 효소마다 다름 |
| 사례 | 관련 단백질 | 주요 분자 사건 | 핵심 학습 개념 |
|---|---|---|---|
| 낭성 섬유증의 일부 유형 | CFTR (예: F508del) | 접힘·가공·막 수송 저하 | 기능 상실·품질 관리 |
| α1-항트립신 결핍의 일부 유형 | α1-항트립신 | 변이에 따른 중합·분비 저하 | 오접힘·세포 내 축적 |
| 알츠하이머병 | Aβ·타우 | 응집과 다양한 세포 손상 경로의 관련성 | 비정상 응집·복합적 병리 |
| 프리온 질환 | PrP | 비정상 접힘 구조의 전환 증폭 | 구조 의존적 자기 증폭 |
| 질문 | 과학적으로 구분할 사항 |
|---|---|
| 프리온에도 유전자가 있는가? | PrP 단백질을 암호화하는 PRNP 유전자가 존재한다. 단백질 구조의 전파 자체는 DNA 복제와 다르다. |
| 모든 CJD가 유전성인가? | 아니다. 산발형이 다수이며 유전형·의료 관련 전파 등 여러 유형이 존재한다. |
| 모든 단백질 응집체가 프리온인가? | 아니다. 응집과 구조적 전파 능력을 구분해야 한다. |
| 학교에서 실제 프리온 실험을 하는가? | 아니다. 감염성 시료를 사용하지 않고 그림·자료 기반으로만 분석한다. |