01
들어가기 | 단백질은 왜 접히며, 왜 때로는 구조를 잃는가?
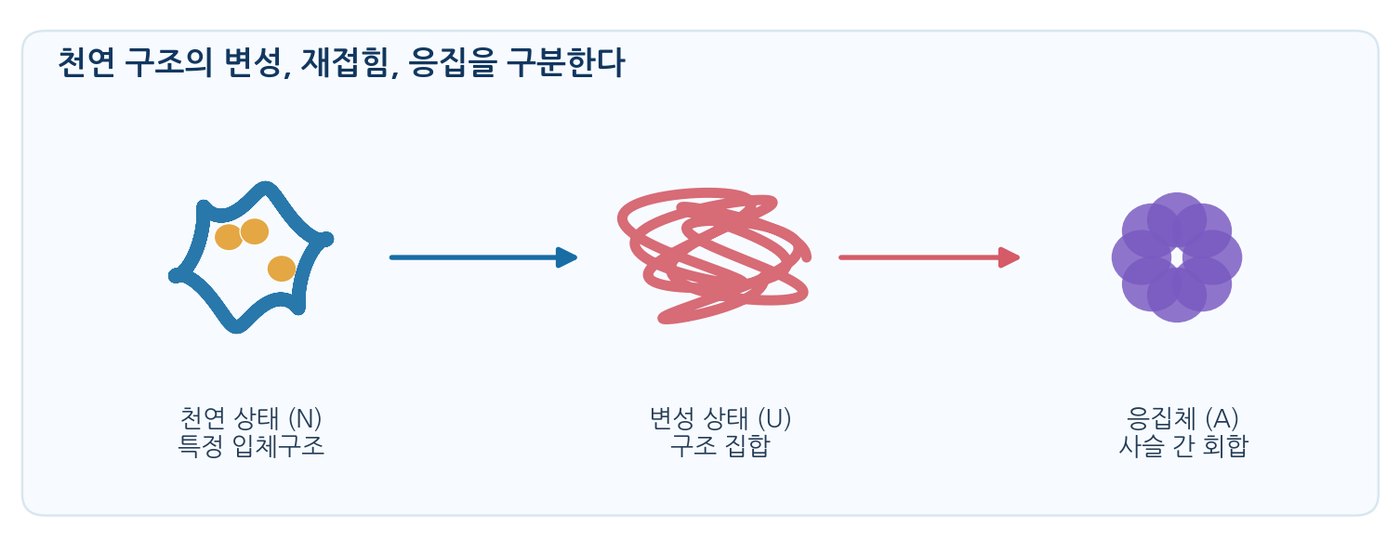
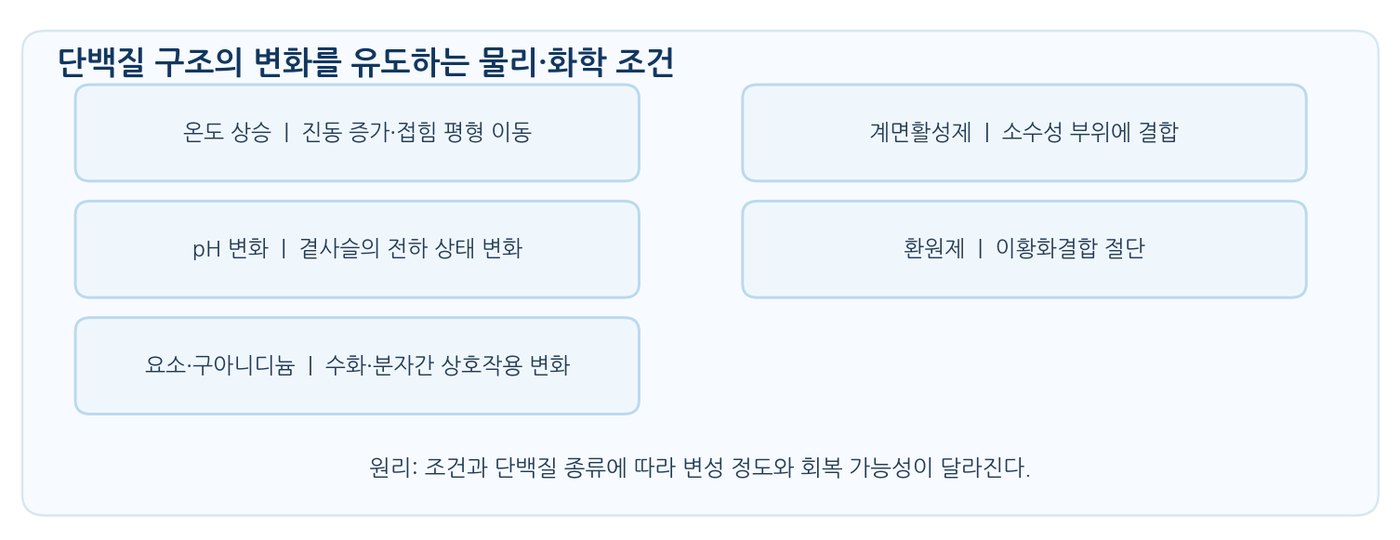
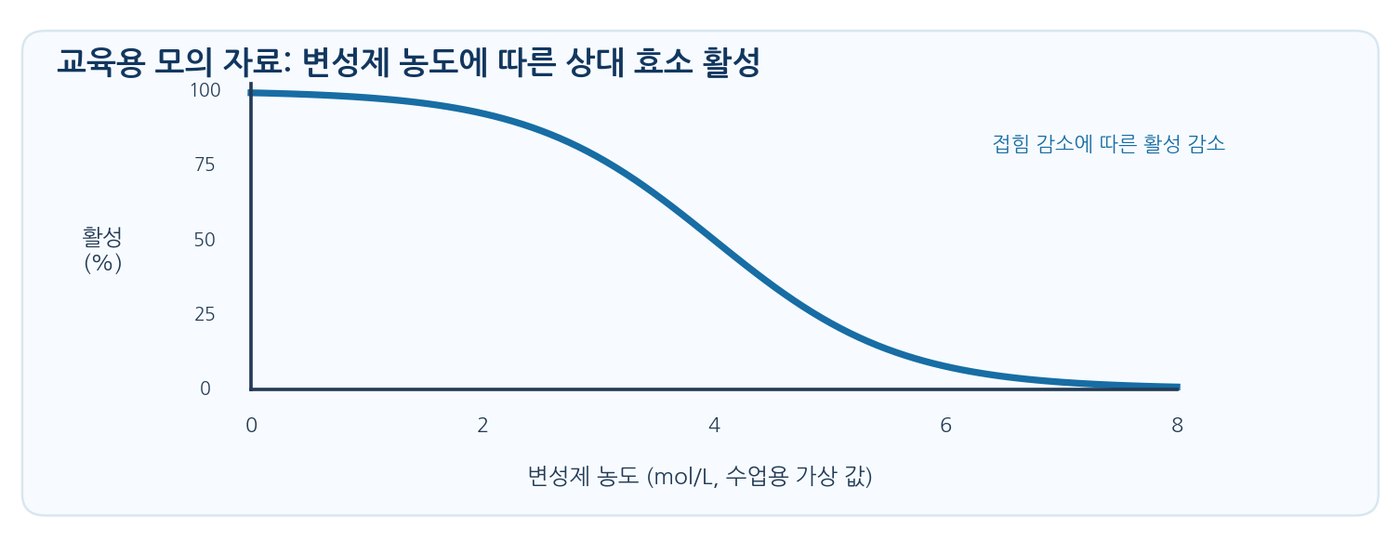
- 변성 = 열·pH·요소·구아니디늄염·계면활성제가 고차 구조를 무너뜨려 활성 상실
- 활성은 구조가 완전히 무너지기 전에 먼저 소실되는 경우가 많음
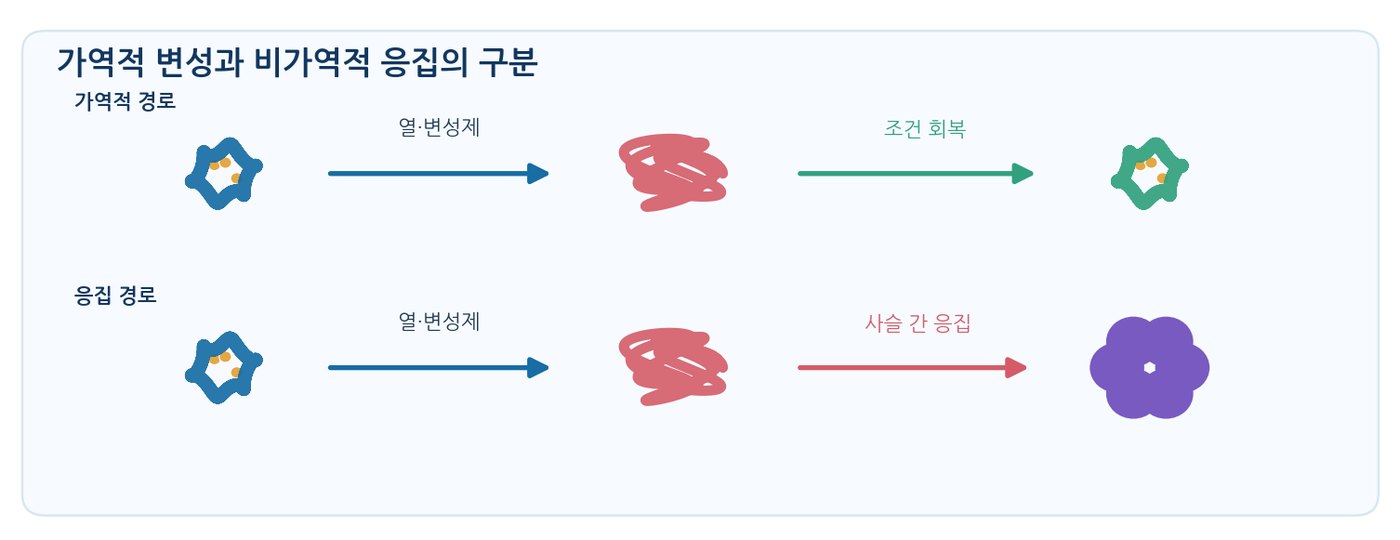
- 가역적 변성(재생 가능)과 비가역적 응집을 구분
- 변성(구조 변화)과 단백질 분해(결합 절단)는 다른 현상
- 변성 요인별 영향: 가열(운동·자유에너지), 극단 pH(이온화·염다리), 요소(용매 상호작용), SDS(소수성 결합), 환원제(S–S 절단)
02
4.1 단백질 구조의 상실은 기능 상실을 초래한다
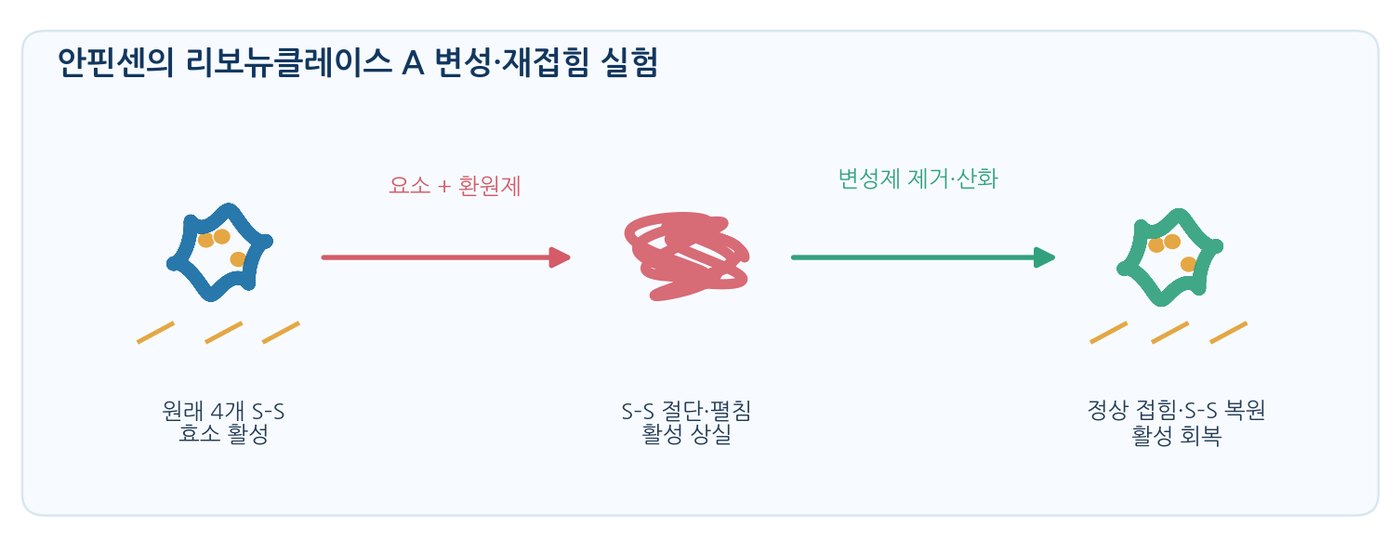
- 안핀센의 리보뉴클레이스 A 실험 = 변성 후 재생만으로 활성 회복 → 서열이 구조를 결정
- 가능한 이황화결합 배치 수가 많아도 실제로는 하나만 선택됨
- 네이티브 상태 = 접근 가능한 상태 중 열역학적으로 가장 안정한 상태
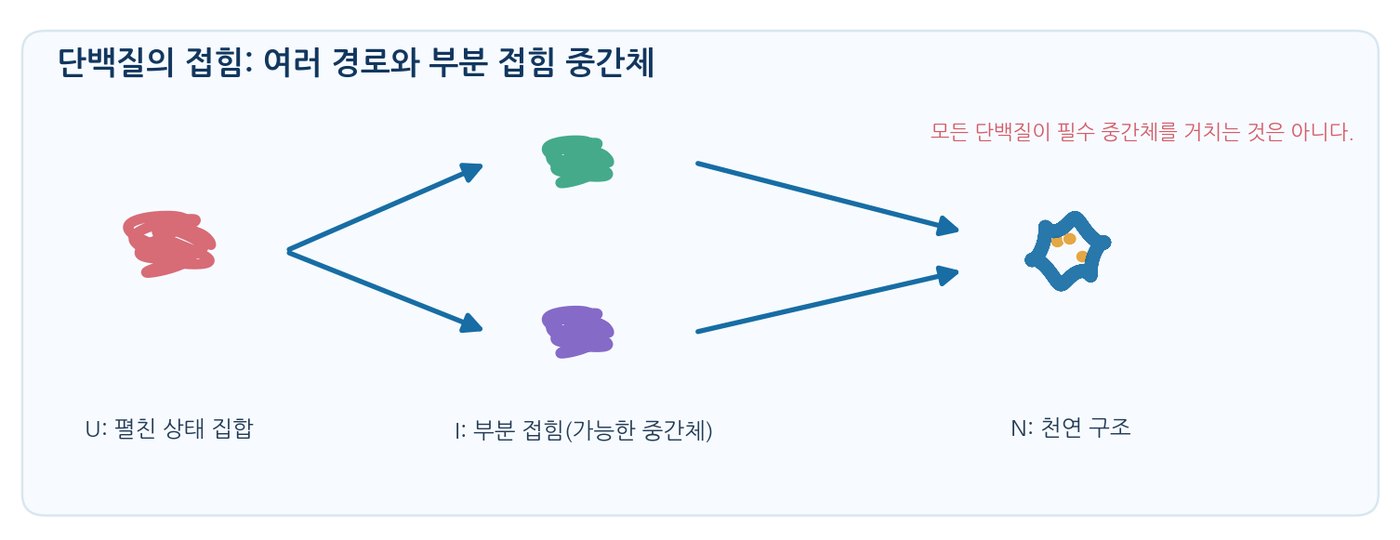
- 서열은 구조를 암호화하지만 접힘 경로까지 유일하게 정하지는 않음
03
4.2 아미노산 서열이 3차 구조를 결정한다
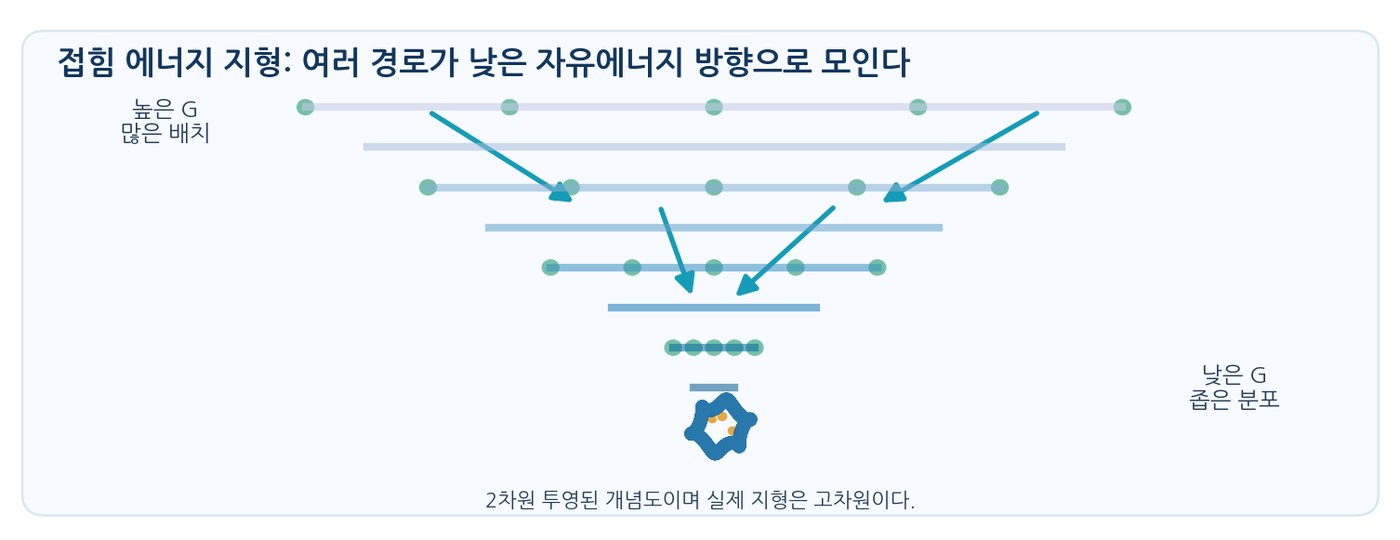
- 레빈탈의 역설 = 모든 구조를 무작위로 시도하면 시간이 우주 나이를 초과
- 접힘 에너지 지형(funnel) = 많은 병렬 경로가 같은 네이티브 상태로 수렴
- 2차 구조가 먼저 형성되고 소수성 붕괴로 molten globule을 거침
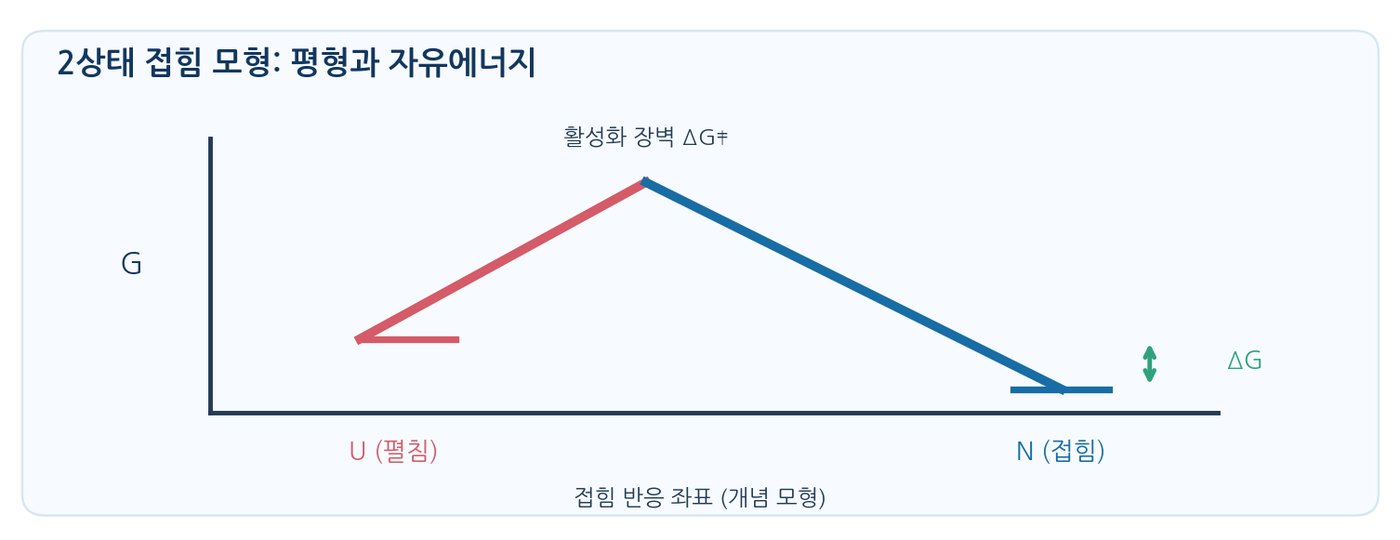
- 열역학적 안정성(ΔG)과 접힘 속도(ΔG‡)는 별개
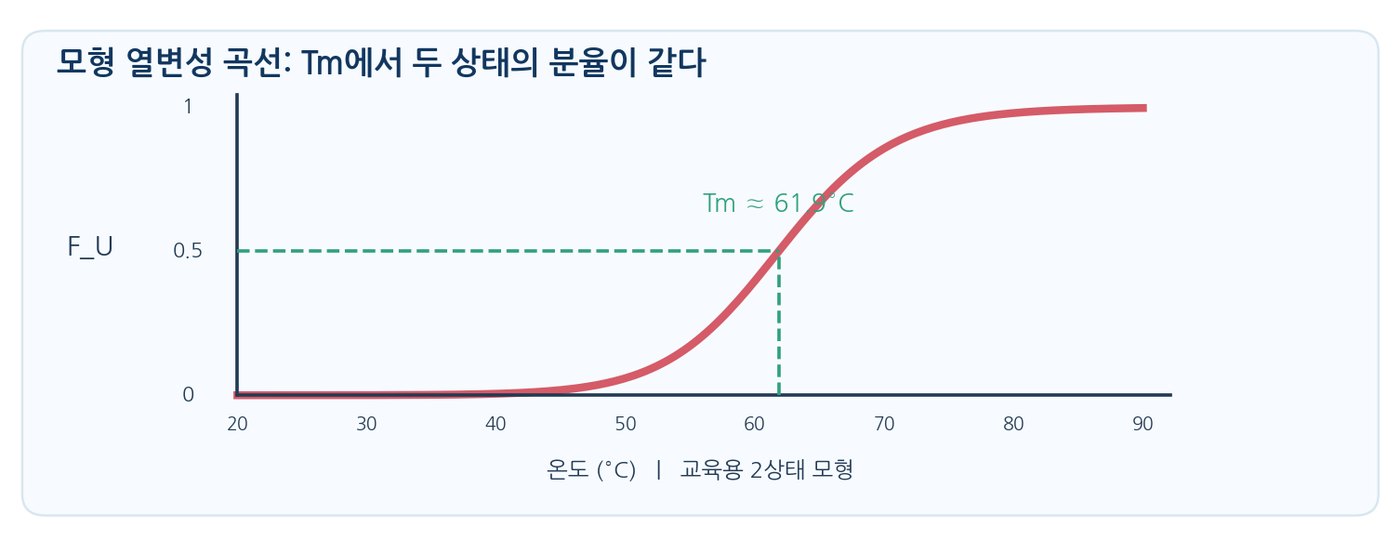
- T_m = 접힌 분율이 50%가 되는 온도, 안정성의 지표
가능한 짝짓기 수 = (8 − 1)!! = 7 × 5 × 3 × 1 = 105
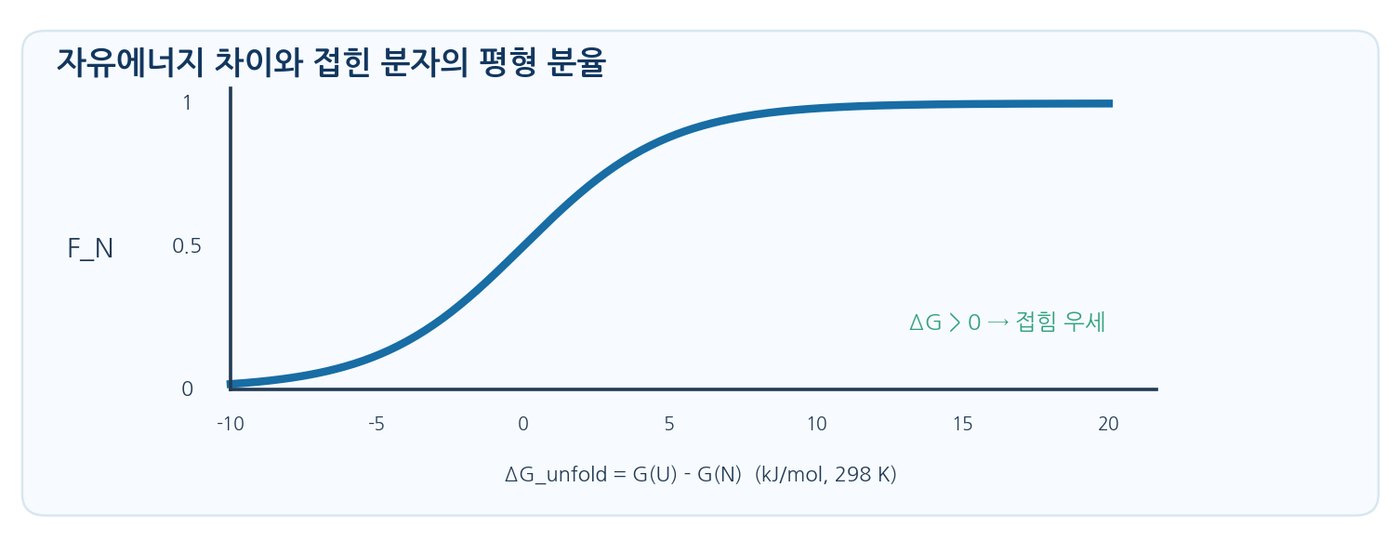
K_U = [U]/[N] ΔG_unfold = −RT ln K_U
F_N = [N]/([N] + [U]) = 1/(1 + K_U) = 1/(1 + e^(−ΔG_unfold/RT))
04
4.3 폴리펩타이드는 여러 경로를 통해 빠르게 접힐 수 있다
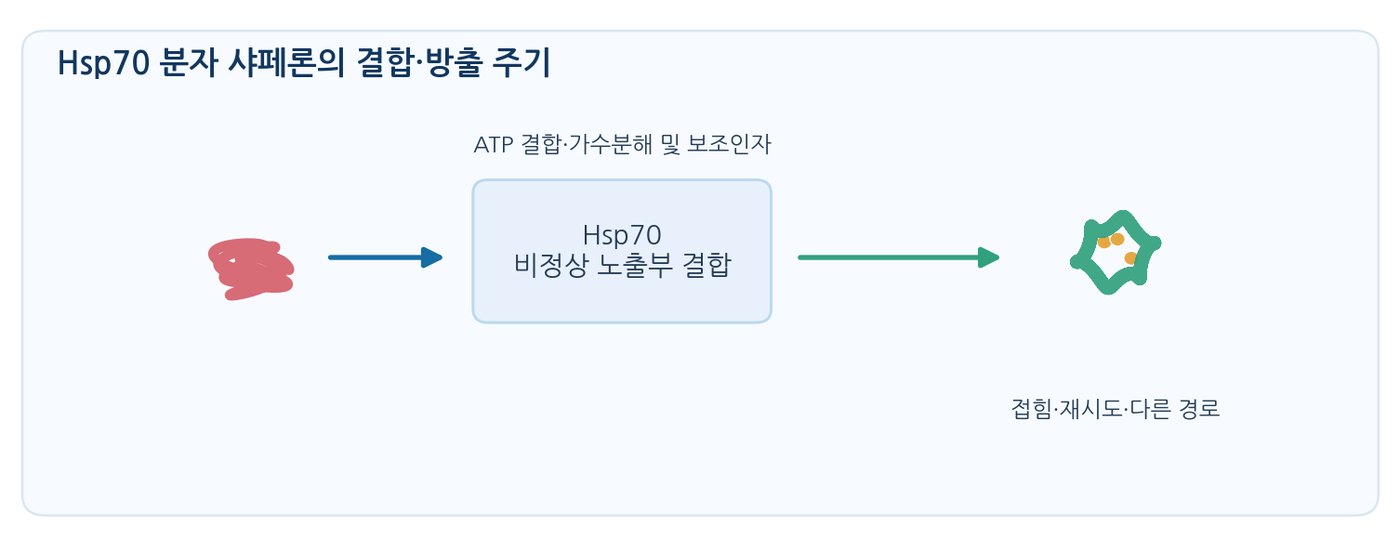
- 분자 샤페론 = 잘못된 사슬 간 결합과 응집을 억제하고 격리된 환경 제공
- Hsp70 = 기질을 결합·방출하며 반복 시도(ATP 사용)
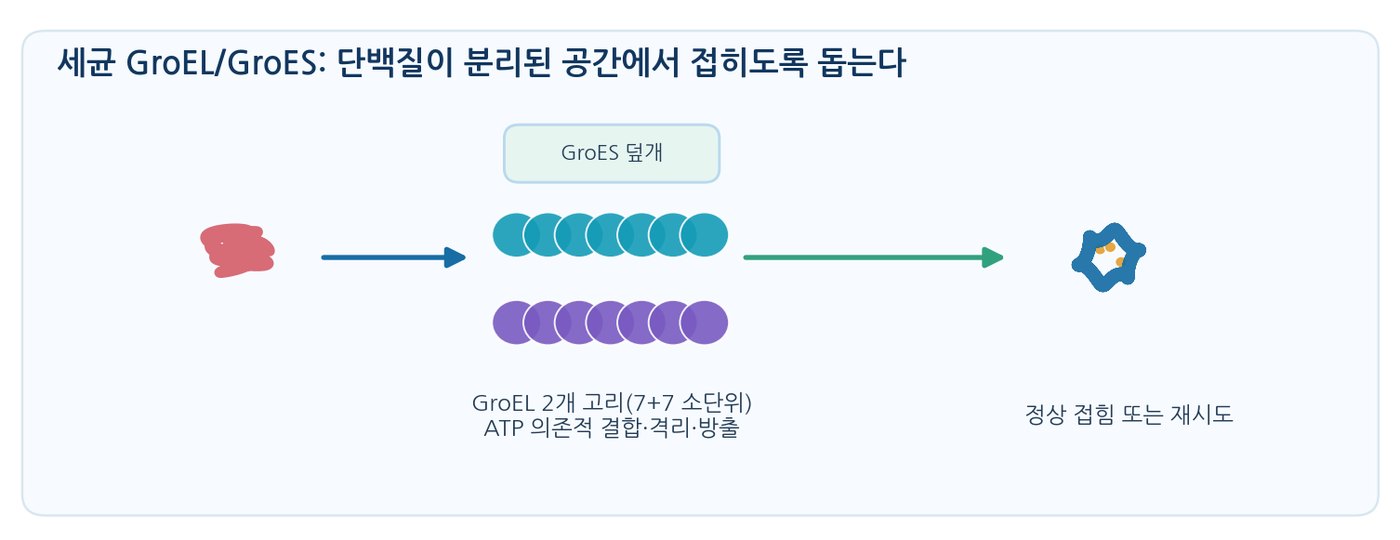
- Hsp60/샤페로닌 = 격리된 방에서 접힘 재시도(세균 GroEL/GroES)
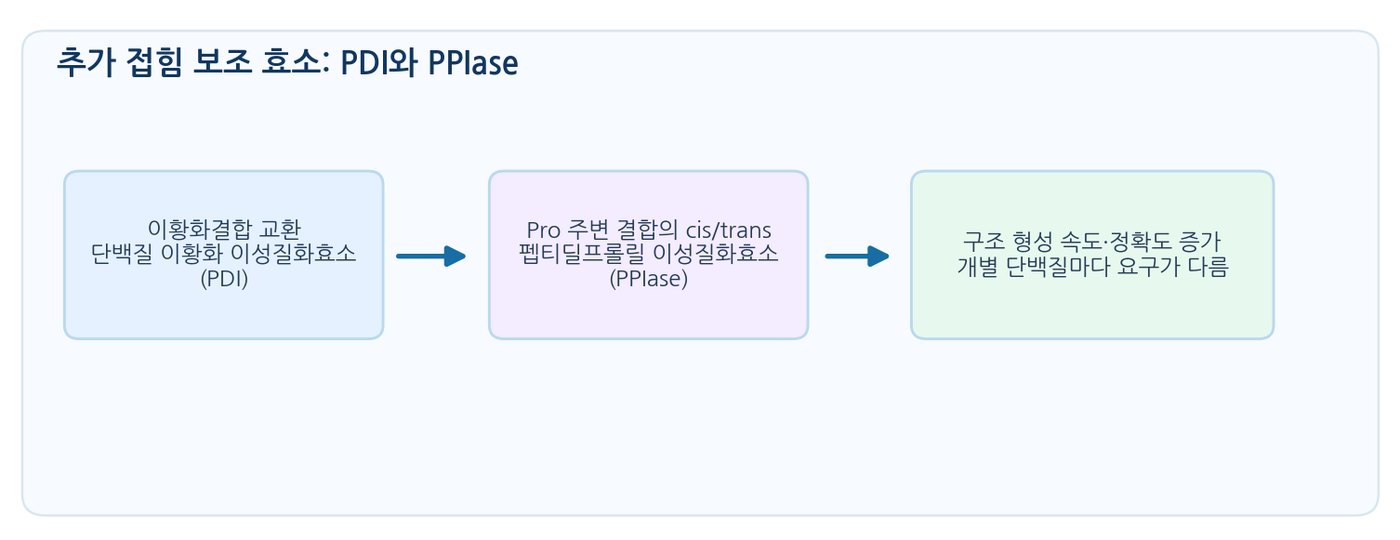
- PDI = 이황화결합 형성·교환 촉진 / PPIase = Pro 인접 펩타이드 결합의 cis/trans 이성질화
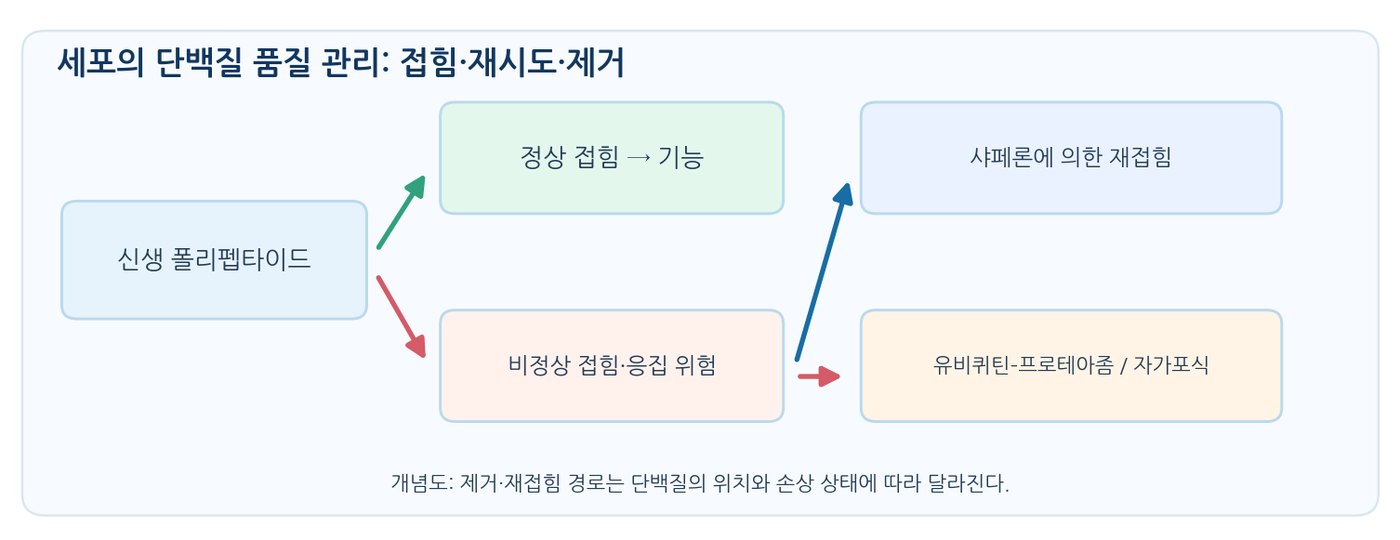
- 품질 관리 = 재접힘 + 제거(단백질분해)의 두 경로
- 샤페론은 최종 구조를 지정하지 않고 off-pathway 함정을 막음
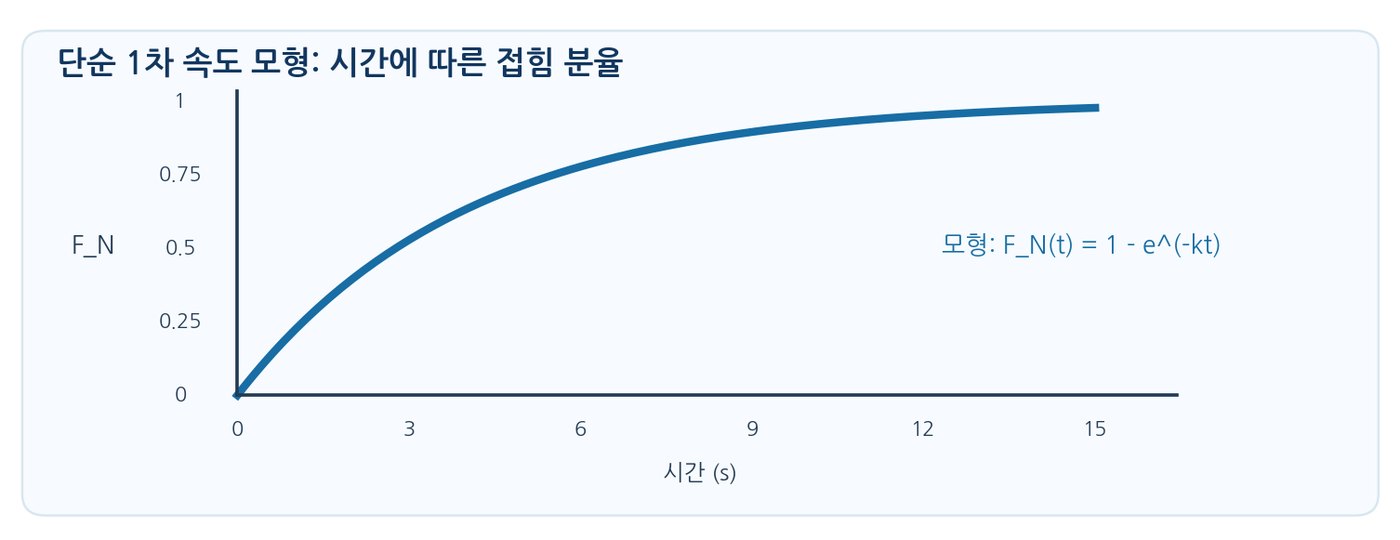
F_N(t) = 1 − e^(−kt) t₁/₂ = ln 2 / k
05
4.4 몇 가지 단백질은 도움을 받아 접힌다
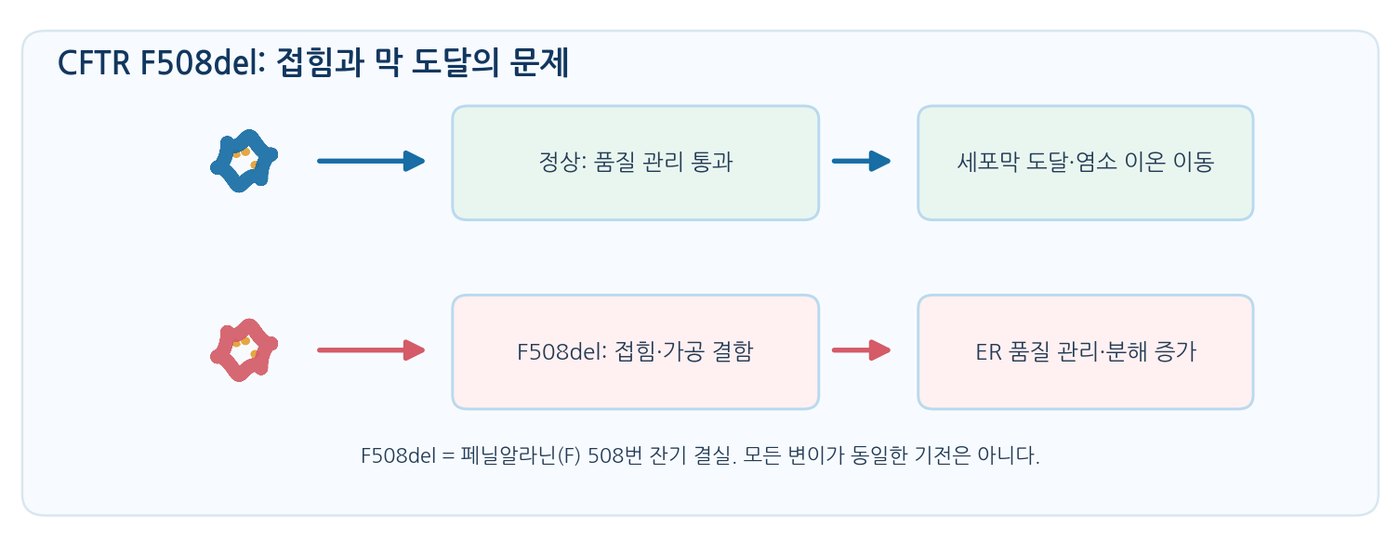
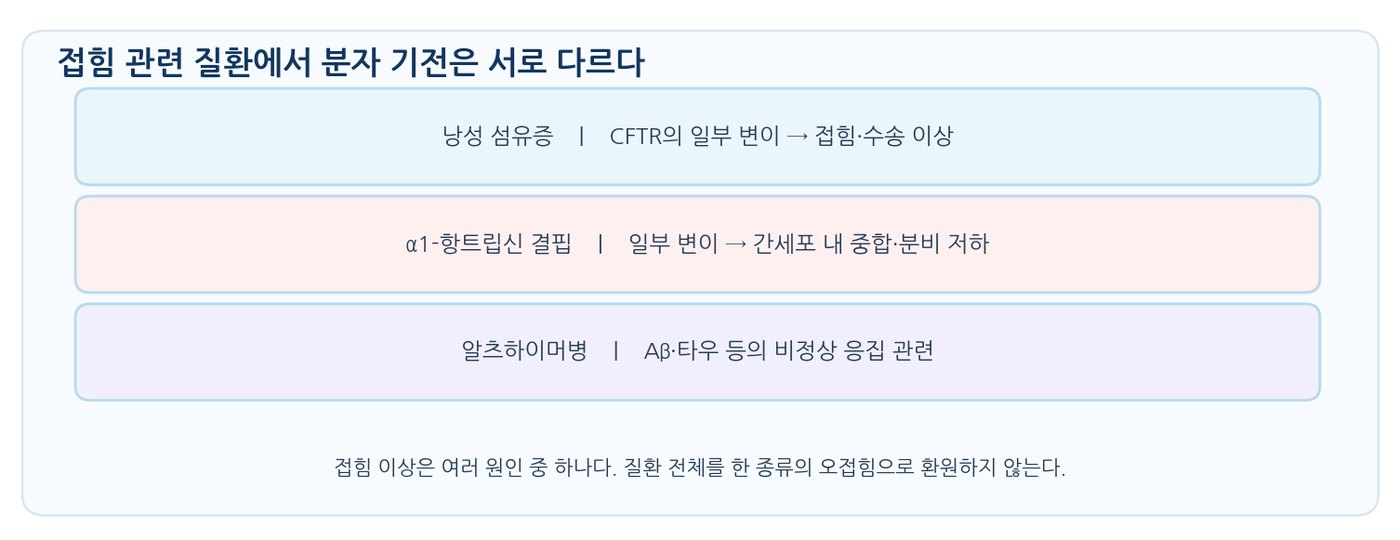
- 낭성 섬유증 = CFTR(F508del) 접힘·가공·막 수송 저하 → 기능 상실
- α1-항트립신 결핍 = 변이 단백질 중합·분비 저하로 세포 내 축적
- 오접힘이 항상 같은 질병 경로를 만드는 것은 아님(기능 상실형 vs 독성 획득형)
- 알츠하이머 = Aβ·타우 응집과 복합적 병리
06
4.5 단백질 접힘의 결함은 유전질환과 여러 질환의 분자적 기전이 될 수 있다
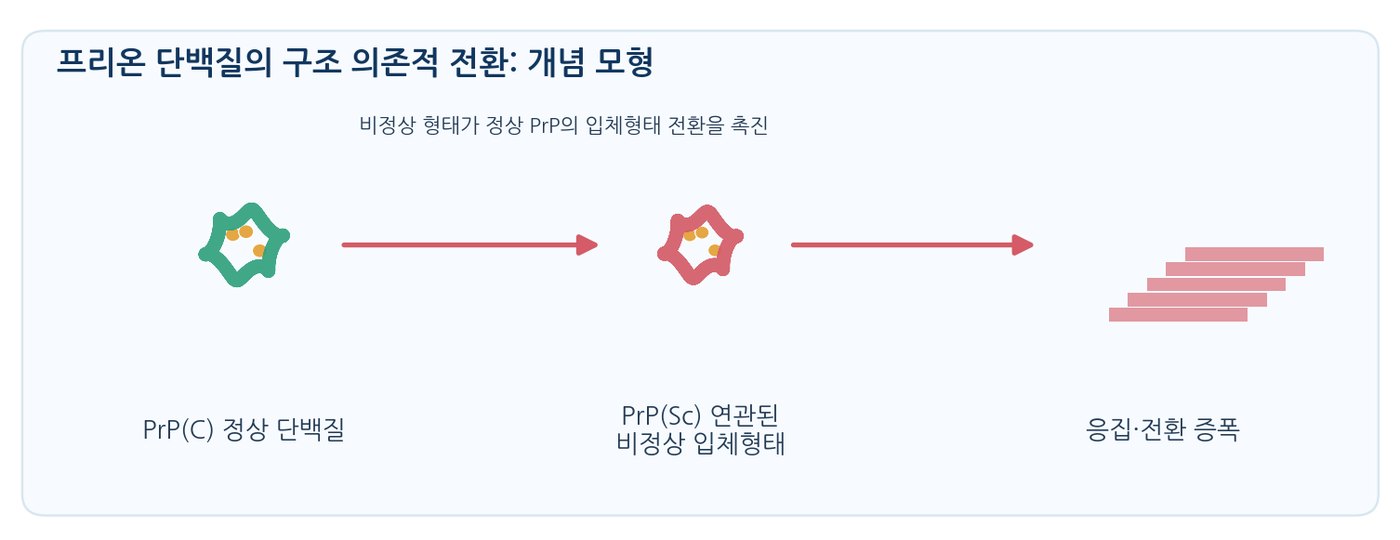
- 프리온 = PrP의 비정상 입체형태가 정상형을 같은 형태로 전환하며 증폭
- 핵산 없이 단백질 구조만으로 전파되는 예외적 기전
- PRNP 유전자는 정상 PrP를 암호화하며, 구조 전파는 DNA 복제와 다름
- 산발형이 다수를 차지하고 유전형·의료 관련 전파도 존재
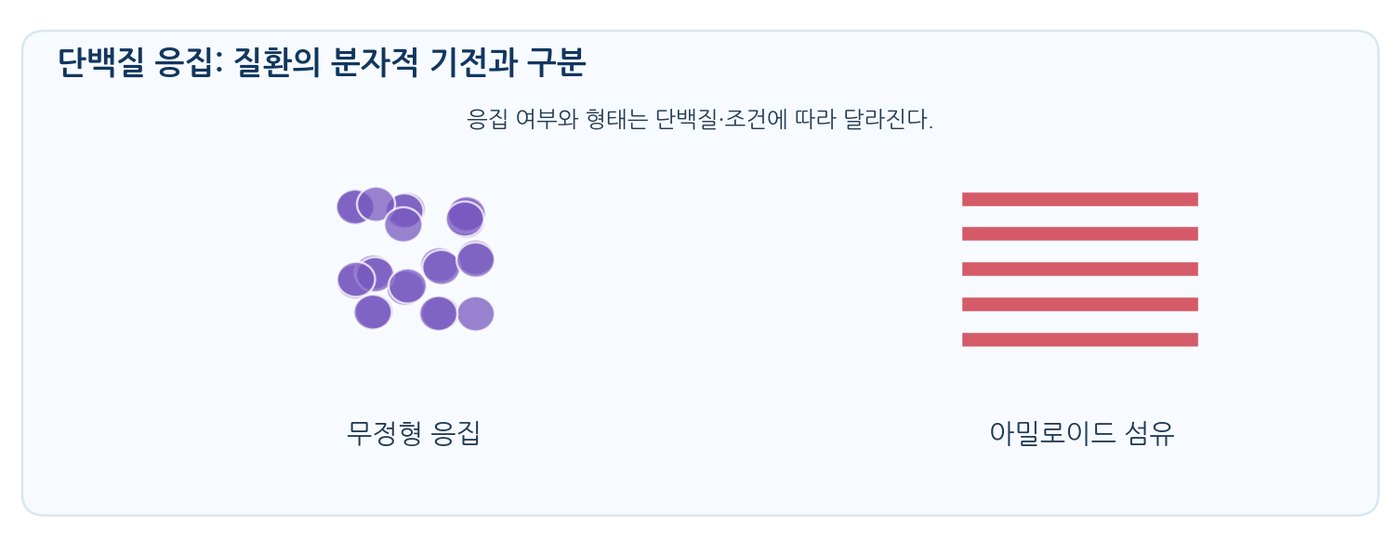
- 모든 응집체가 프리온은 아니며 응집과 구조 전파 능력을 구분해야 함
07
[별도설명 4-6] 잘못된 단백질 접힘에 의한 죽음: 프리온 병
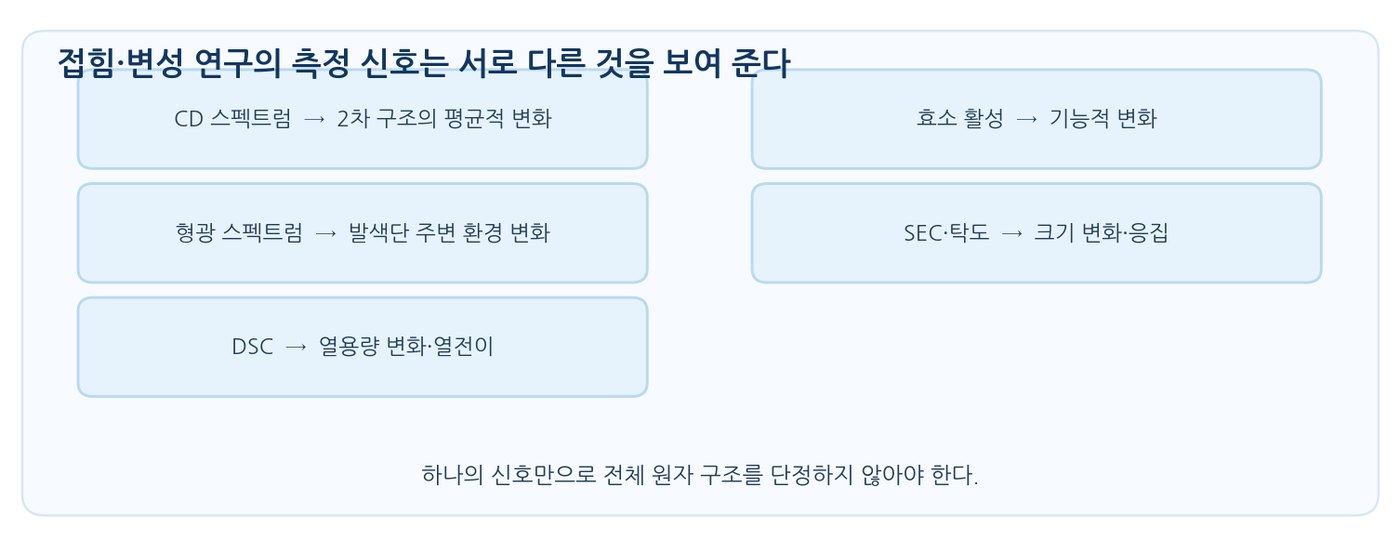
- 어떤 신호가 어떤 현상을 보여주는지 구분: 탁도(응집), CD(2차 구조), 형광(국소 환경), DSC(열역학)
- 열변성 곡선에서 접힌 분율이 50%가 되는 온도가 T_m
- 가역성과 열적 평형을 점검해야 신뢰할 수 있는 ΔG 산출 가능
08
4.6 접힘과 변성을 정량적으로 연구한다
- 탐구 활동 = 교재 수록 탐구로, 본 웹 교재에서는 제외
F_N = (Y_obs − Y_U)/(Y_N − Y_U) [두 상태 신호가 선형 혼합된다고 가정]
09
교재 참고 문헌 및 자료 검증 기준
- 참고 문헌·자료 검증 기준 = 본 웹 교재에서는 제외
참조 자료 · References
| 변성 요인 | 주된 분자적 영향 | 관찰 가능한 결과 | 주의할 점 |
|---|---|---|---|
| 가열 | 상태 간 자유에너지와 분자 운동 변화 | 활성 감소, 탁도 증가 | 열변성과 응집은 구분해야 함 |
| 강한 pH 변화 | 곁사슬의 이온화·염다리 변화 | 용해도 또는 활성 변화 | 단백질의 pH 최적 조건은 다름 |
| 요소·구아니디늄염 | 단백질·용매 상호작용 재분배 | 접힘 상태 분율 변화 | 농도와 시간의 영향 존재 |
| SDS 등 계면활성제 | 소수성 표면에 결합·구조 붕괴 | SDS-PAGE에서 사슬 분리 | 막단백질은 조건이 다를 수 있음 |
| 환원제 | Cys-Cys 이황화결합 환원 | 특정 단백질의 안정성 감소 | 모든 단백질에 S-S가 있는 것은 아님 |
| ΔG_unfold (kJ/mol) | K_U = [U]/[N] | F_N (298 K) | 해석 |
|---|---|---|---|
| +10.0 | 0.0177 | 0.983 | 접힌 상태 크게 우세 |
| +5.0 | 0.133 | 0.883 | 접힌 상태 우세 |
| 0.0 | 1.000 | 0.500 | 두 상태 같은 분율 |
| −2.5 | 2.742 | 0.267 | 펼친 상태 우세 |
| 구분 | 대표 단백질 | 주요 기능 | ATP 필요성 |
|---|---|---|---|
| Hsp70 계열 | DnaK·Hsp70·BiP | 부분 접힘 사슬의 결합·방출·응집 방지 | 일반적으로 주기 조절에 필요 |
| 샤페로닌 | 세균 GroEL/GroES, 일부 Hsp60 | 격리된 공간에서 접힘 재시도 | 일반적으로 필요 |
| PDI | 단백질 이황화 이성질화효소 | 이황화결합 형성·교환 촉진 | 반응과 재생 체계에 따라 다름 |
| PPIase | 펩티딜프롤릴 이성질화효소 | Pro 인접 펩타이드 결합의 cis/trans 이성질화 | 효소마다 다름 |
| 사례 | 관련 단백질 | 주요 분자 사건 | 핵심 학습 개념 |
|---|---|---|---|
| 낭성 섬유증의 일부 유형 | CFTR (예: F508del) | 접힘·가공·막 수송 저하 | 기능 상실·품질 관리 |
| α1-항트립신 결핍의 일부 유형 | α1-항트립신 | 변이에 따른 중합·분비 저하 | 오접힘·세포 내 축적 |
| 알츠하이머병 | Aβ·타우 | 응집과 다양한 세포 손상 경로의 관련성 | 비정상 응집·복합적 병리 |
| 프리온 질환 | PrP | 비정상 접힘 구조의 전환 증폭 | 구조 의존적 자기 증폭 |
| 질문 | 과학적으로 구분할 사항 |
|---|---|
| 프리온에도 유전자가 있는가? | PrP 단백질을 암호화하는 PRNP 유전자가 존재한다. 단백질 구조의 전파 자체는 DNA 복제와 다르다. |
| 모든 CJD가 유전성인가? | 아니다. 산발형이 다수이며 유전형·의료 관련 전파 등 여러 유형이 존재한다. |
| 모든 단백질 응집체가 프리온인가? | 아니다. 응집과 구조적 전파 능력을 구분해야 한다. |
| 학교에서 실제 프리온 실험을 하는가? | 아니다. 감염성 시료를 사용하지 않고 그림·자료 기반으로만 분석한다. |