유전자 지령의 변화에 의하여 진화가 발생한다
1.1 유전자 서열의 변화는 유전적 다양성의 원천이다
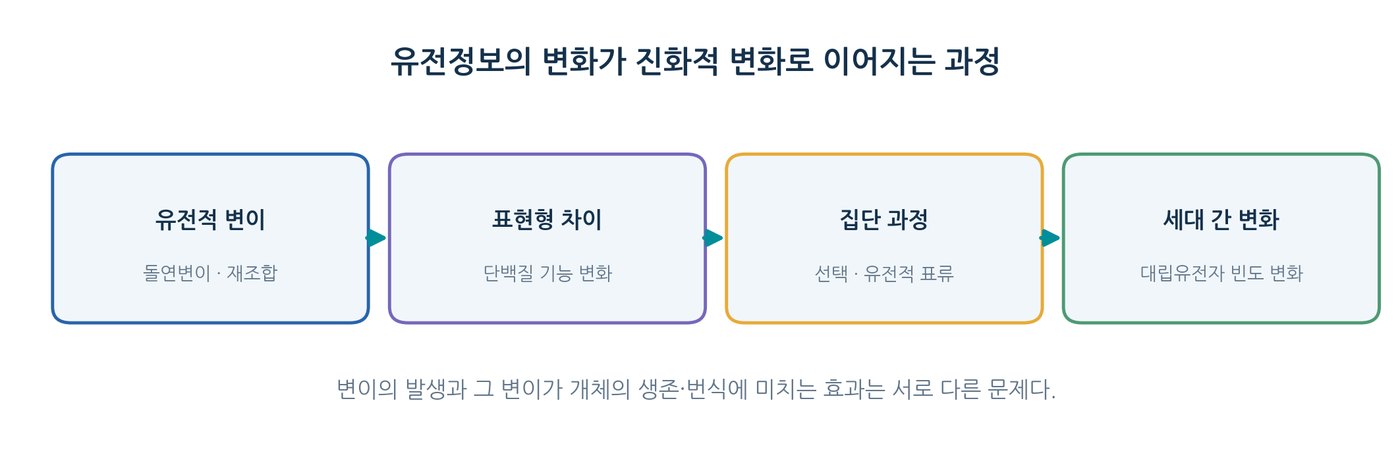
생물의 진화는 세대가 지남에 따라 집단의 유전적 구성이 변화하는 현상이다. DNA 서열의 치환·삽입·결실·복제 수 변이, 염색체 구조 변화 등은 새로운 유전적 변이를 만든다. 감수분열에서 일어나는 재조합은 이미 존재하는 변이의 조합을 바꾸며, 세균과 고세균에서는 형질전환·형질도입·접합 등 수평적 유전자 이동이 새로운 유전자를 유입시킬 수 있다. 따라서 진화는 개체 하나가 생애 동안 ‘필요해서’ 바뀌는 과정과 다르다.
유전자 변화가 반드시 단백질 변화를 일으키는 것은 아니다. 유전 암호의 중복성에 의해 아미노산이 변하지 않는 동의치환이 가능하고, 비암호화 조절 부위의 변화는 발현량을 바꿀 수 있다. 반대로 아미노산이 바뀌더라도 단백질 기능이나 개체 적합도가 거의 달라지지 않을 수 있다. 자연선택은 변이의 발생 원인이 아니라, 생존·번식 차이를 통해 변이의 빈도에 작용하는 과정이다.
1.2 자연선택과 유전적 표류는 변이의 빈도에 서로 다르게 작용한다
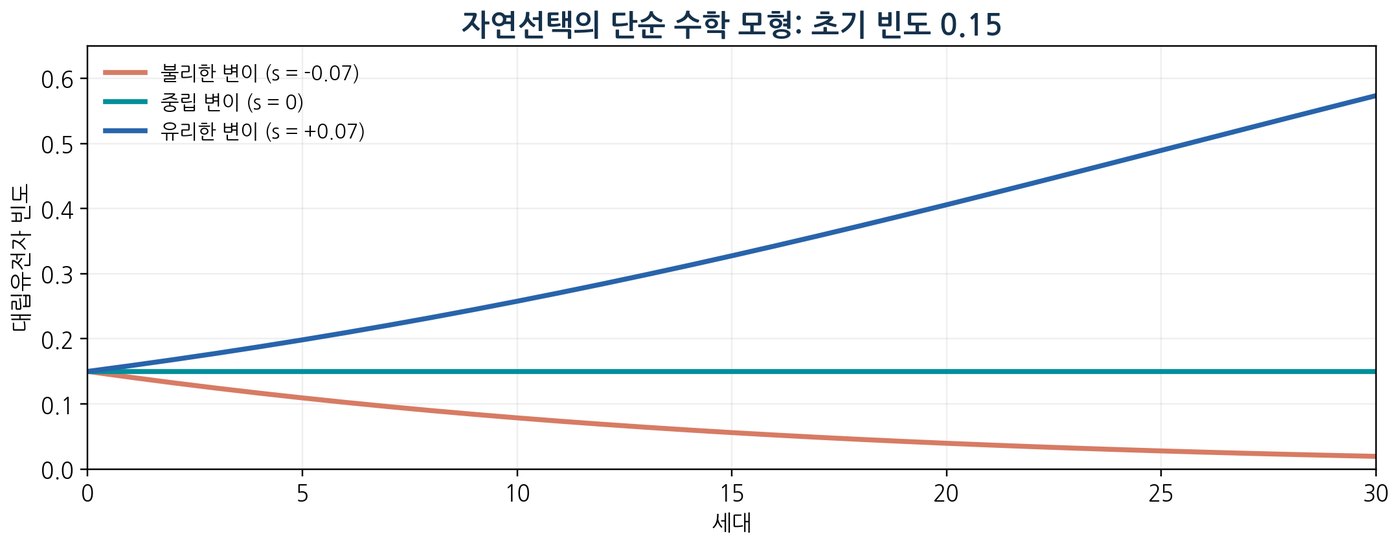
자연선택이 일어나려면 유전 가능한 형질 차이가 번식 성공의 차이와 관련되어야 한다. 유전적 표류(genetic drift)는 유전적 적합도에 상관없이 유한한 집단에서 우연에 의해 대립유전자 빈도가 변하는 현상이다. 한 대립유전자의 빈도를 p라 하고 단순한 반수체 모형에서 상대 적합도를 1+s로 두면 다음 세대의 기대 빈도는 p′ = p(1+s)/(1+sp)가 된다. 이 식은 세대가 겹치지 않고, 이동·새 돌연변이·표류를 무시하는 단순 교육용 모형이다.
계산 예제 | 선택계수 s = 0.10
초기 빈도 p = 0.20이면 p′ = 0.20×1.10/(1+0.20×0.10) = 0.22/1.02 ≈ 0.216이다. 한 세대의 기대 증가량은 약 0.016이다. 실제 집단에서는 개체 수, 환경 변화, 유전적 배경 등의 영향을 추가로 고려해야 한다.
생체분자는 처음에 화학적 진화에 의하여 생겼다
2.1 화학적 진화는 무기·단순 분자에서 복잡한 반응계로 나아가는 가능한 경로다
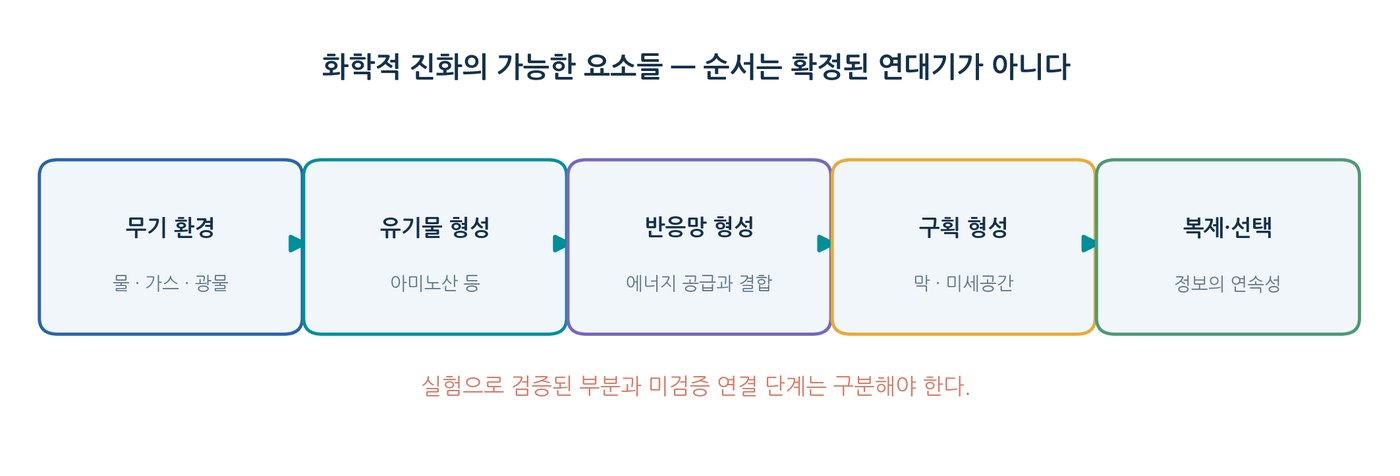
화학적 진화(chemical evolution)는 생명체가 없는 조건에서도 화학 반응을 통해 유기분자와 복잡한 분자계가 형성되고, 특정 반응계가 점차 복제와 선택 같은 생명적 특성을 획득했을 가능성을 탐구하는 연구 영역이다. 유기분자의 생성, 중합 반응, 분자의 농축, 막 구획, 복제 가능한 정보 체계의 형성은 서로 관련되어 있지만 정확한 발생 순서는 확인되지 않았다. 생명체를 구성하는 물질이 비생물 반응으로 형성된 사실과 생명체 자체가 생성되었다는 주장은 다르다.
2.2 밀러–유리 실험은 생명에 필요한 일부 유기분자의 생성 가능성을 보였다
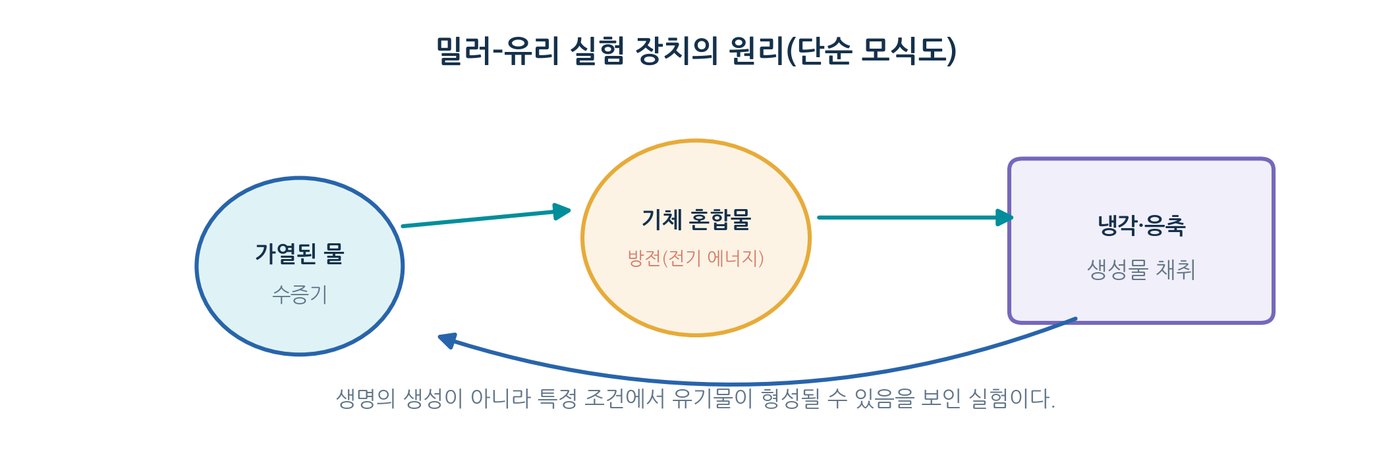
1953년 밀러가 수행한 전기 방전 실험은 물과 단순 기체를 순환시키고 전기 에너지를 공급했을 때 아미노산 등을 포함한 유기물이 생성될 수 있음을 보여주었다. 중요한 결론은 ‘무생물 조건에서도 유기분자 생성 반응이 가능하다’는 것이다. 그러나 당시 사용한 기체 조성은 초기 지구 대기의 유일하거나 확정된 재현이 아니며, 해당 실험에서 살아 있는 세포가 만들어진 것은 아니다. 연구자들은 이후 자외선, 운석 물질, 열수, 광물 표면 등 다양한 전구체와 에너지 공급 경로를 조사하고 있다. [1]
2.3 막 구획과 반응망의 결합은 별개의 조건을 필요로 한다
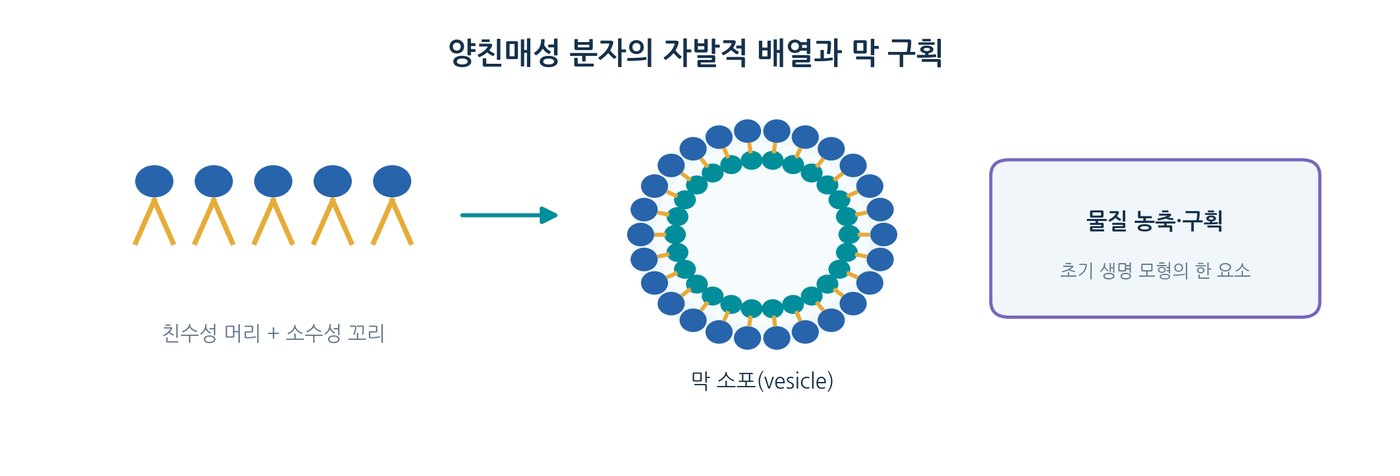
친수성 머리와 소수성 꼬리를 가진 양친매성 분자는 물속에서 미셀이나 막 소포를 형성할 수 있다. 막은 내부와 외부를 구별하여 물질을 농축하고, 반응물·생성물이 무제한 희석되는 것을 줄일 수 있다. 다만 막 형성만으로 유전과 대사가 자동으로 생겨나는 것은 아니다. 분자 복제, 에너지 공급, 막의 성장·분열, 유전정보의 전달이 얼마나 함께 작동할 수 있었는지는 원시세포(protocell) 연구의 핵심 문제다.
RNA와 그 전구체들이 최초의 유전자 및 촉매일지도 모른다
3.1 RNA 세계 가설의 핵심은 정보와 촉매 기능의 결합이다
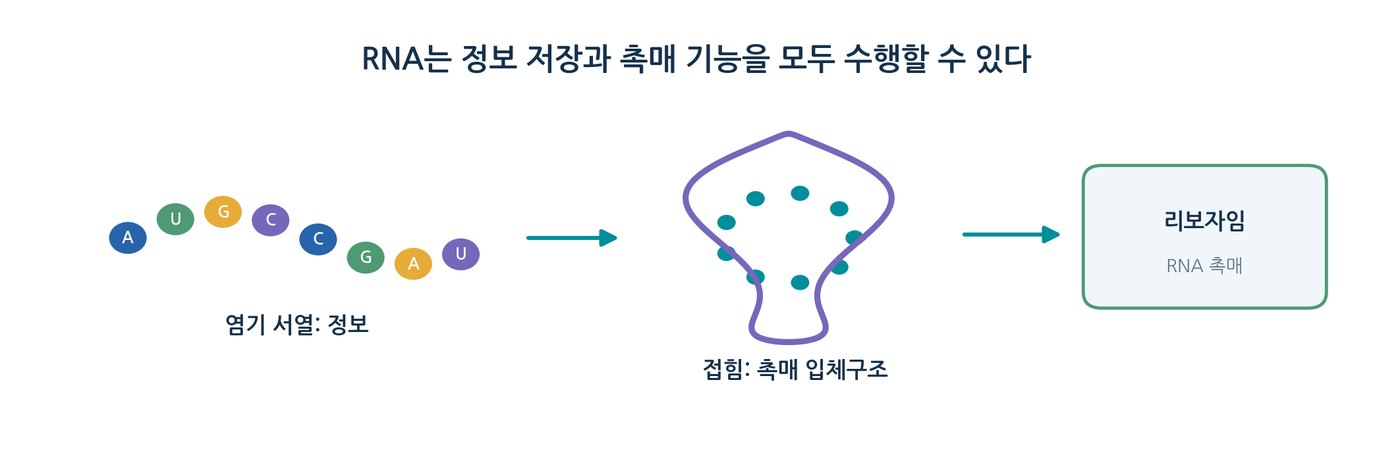
현대 세포에서는 DNA가 안정적인 정보 저장, 단백질이 폭넓은 촉매, RNA가 정보 전달과 다양한 조절 기능을 맡는다. 반면 RNA 세계(RNA world) 가설은 원시 진화의 어느 단계에서 RNA 또는 유사한 고분자가 유전정보를 저장하면서 동시에 복제·화학 반응에 관여했을 것이라고 제안한다. 이는 ‘DNA와 단백질이 어느 것이 먼저인가’라는 문제를 탐구하는 하나의 접근이다. 핵심 가설은 RNA 세계가 현대 세포 이전의 중간 단계였다는 점이지, 오늘날 모든 RNA가 효소처럼 작용한다는 뜻이 아니다. [2]
3.2 리보자임과 리보솜은 RNA의 촉매 가능성을 실험적으로 보여준다
리보자임(ribozyme)은 화학 반응을 촉매하는 RNA다. 토머스 체크의 자기 스플라이싱 RNA와 시드니 올트먼의 RNase P 연구는 RNA가 단순한 유전정보 전달체가 아니라 촉매가 될 수 있음을 보여주었다. 두 연구자는 1989년 노벨 화학상을 받았다. 리보솜의 펩타이드 결합 형성 중심은 리보솜 RNA(rRNA)가 주요 촉매 역할을 수행한다. 이는 RNA 세계를 뒷받침하는 분자적 단서이지만 최초 복제계의 실제 역사까지 직접 재현한 증거는 아니다. [2][3]
3.3 RNA 세계 가설은 여전히 해결되지 않은 화학적 문제를 남긴다
원시 환경에서 활성화된 뉴클레오타이드가 충분히 만들어지고, 염기가 결합해 안정된 긴 RNA를 형성했으며, 자기 복제 오류를 제어하고, 물속에서 가수분해와 분해를 견디며, 동시에 막과 에너지 대사를 결합했는지는 모두 해명되지 않았다. RNA보다 앞선 다른 고분자나 짧은 펩타이드·광물 촉매 등이 관여했을 가능성도 연구되고 있다. 따라서 “RNA는 촉매가 될 수 있다”는 실험적 사실과 “최초의 유전자도 RNA였다”는 역사적 가설을 구분해야 한다.
생물의 진화는 35억 년 이상 전부터 시작되었다
4.1 화석과 지화학 기록은 생명의 초기 존재를 추적한다
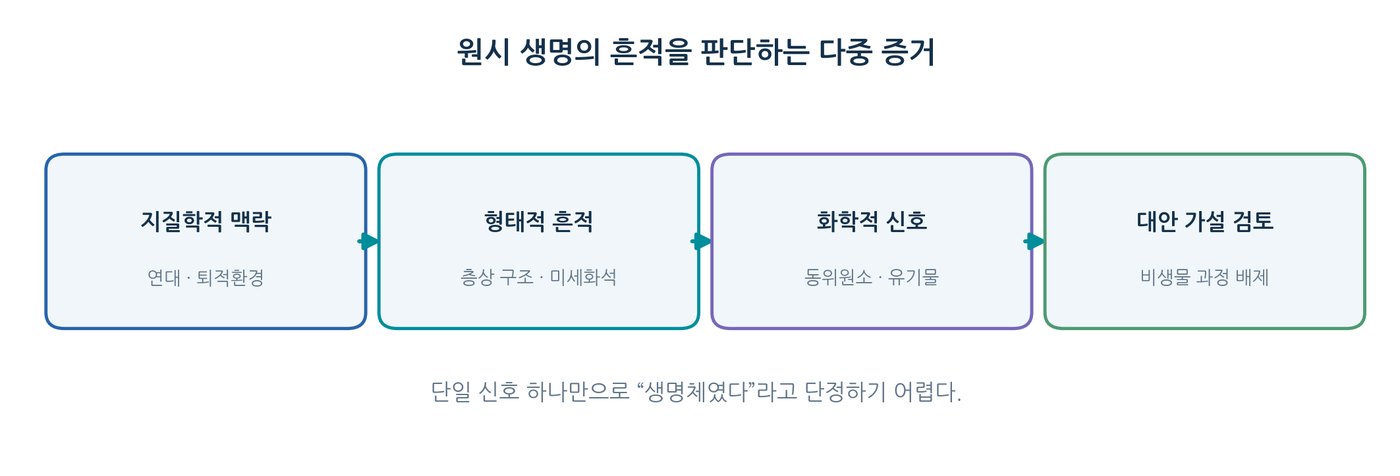
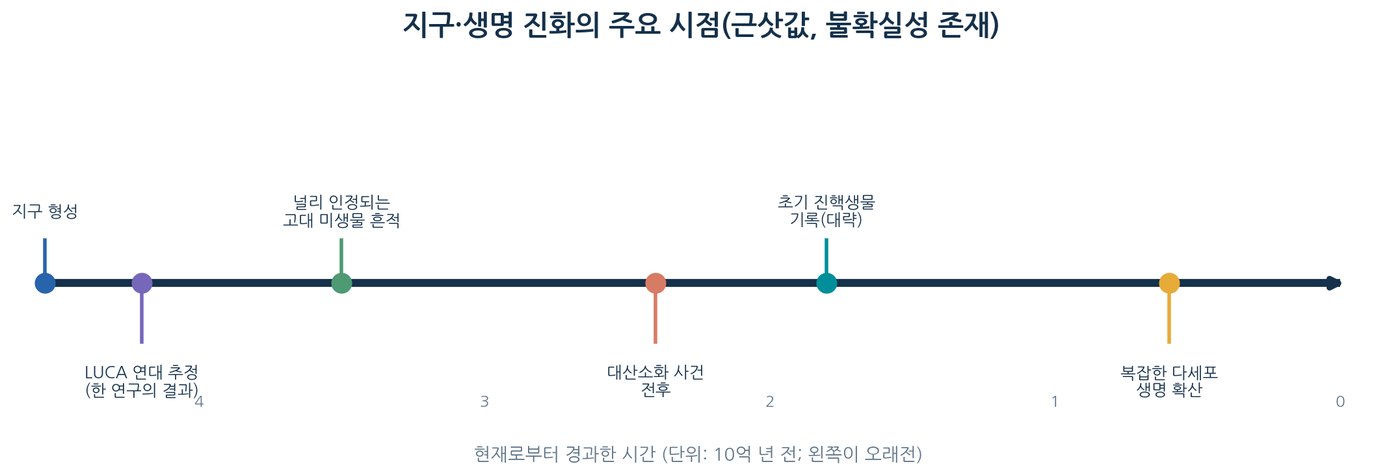
지구의 형성 시점은 약 45.4억 년 전으로 추정된다. 약 35억 년 전의 스트로마톨라이트와 고대 미생물 생명 흔적은 초기 생명체의 존재를 뒷받침하는 비교적 확실한 자료다. 37억 년 전 등의 더 오래된 생명 흔적에 대한 보고도 있으나 비생물학적 구조와 구별하는 방법, 암석의 변형 및 오염 여부를 두고 해석이 달라질 수 있다. “가장 오래된 널리 인정되는 증거의 연대”와 “생명이 실제 처음 나타난 시점”은 동일하지 않다. [4][5]
미생물이 만든 층상 구조(스트로마톨라이트), 미세화석의 형태, 탄소 동위원소 분별, 유기분자의 조성, 암석이 형성된 지질학적 환경 등 서로 독립적인 근거가 일치할수록 해석이 강해진다. 예컨대 탄소 동위원소 신호는 생물의 대사에 의해 나타날 수 있지만 일부 비생물학적 과정도 유사한 값을 만들 수 있으므로 하나의 신호만으로 결론 내리지 않는다.
4.2 분자시계와 LUCA는 서로 다른 시계열 문제다
분자시계(molecular clock)는 여러 계통의 DNA 또는 단백질 서열 차이와 진화속도, 화석 교정점을 이용해 계통 분기 시점을 통계적으로 추정하는 방법이다. 진화속도가 항상 일정하지 않고, 수평적 유전자 이동·유전자 중복·유전자 손실이 발생하므로 추정에는 불확실성이 수반된다. LUCA(last universal common ancestor, 최후 보편 공통 조상)는 현재 알려진 세포 생물 계통이 공유하는 가장 최근의 공통 조상을 의미한다. LUCA가 곧 ‘지구 최초의 생명체’라는 뜻은 아니다.
2024년 한 계통유전체 연구는 LUCA 시점을 약 42억 년 전(추정 범위 약 40.9~43.3억 년 전)으로 추정했지만, 이는 특정 자료와 모형에 기반한 연구 결과이며 보편적으로 확정된 날짜가 아니다. LUCA의 대사와 생태적 복잡성도 여러 모형으로 추정한다. 교과 수준에서는 “최소한 35억 년 전에는 생명이 존재했다는 강한 증거가 있다”는 명제와 “LUCA는 약 42억 년 전이었을 수 있다”는 추정값을 별도로 다루는 것이 타당하다. [6]
최초의 세포는 아마 무기 연료를 사용하였을 것이다
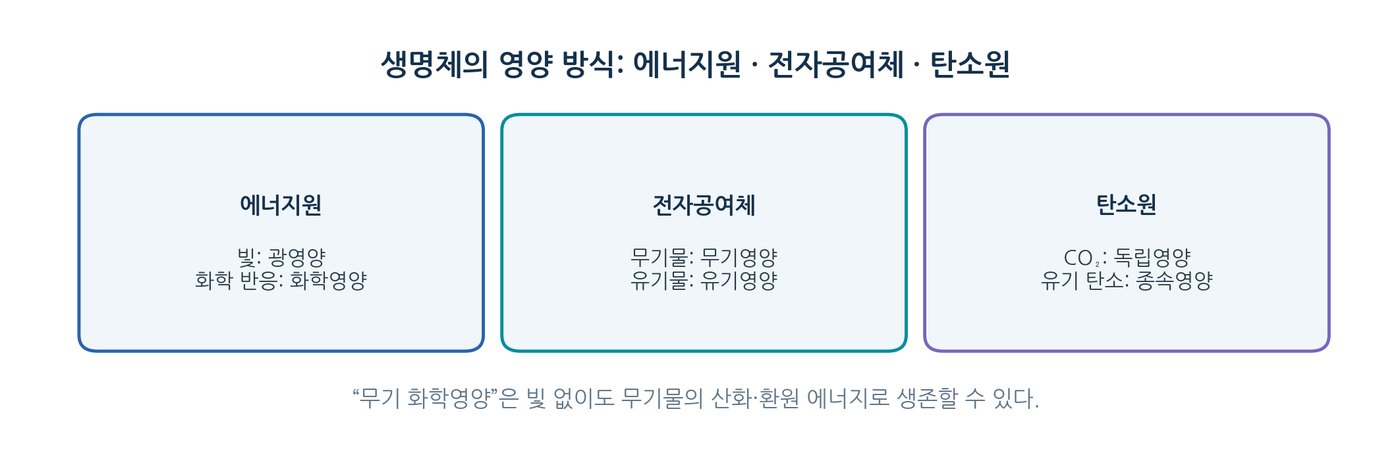
5.1 생물의 에너지 대사는 빛뿐 아니라 산화·환원 반응을 이용한다
광합성은 광자를 통해 전자를 높은 에너지 상태로 들뜨게 하고 에너지 보존 반응을 구동한다. 반면 화학영양생물은 특정 물질의 산화·환원 반응에서 방출되는 자유에너지로 ATP 합성 등 생체 반응을 진행한다. 무기화학영양생물(chemolithotroph)은 H₂, H₂S, Fe²⁺, NH₃ 등 무기 전자공여체를 활용할 수 있다. 어떤 물질이 실제 에너지원이 되는지는 전자받개, pH, 농도, 온도에 따라 달라진다. 단순히 반응식이 가능하다는 것과 생체가 충분한 에너지를 얻는 것은 다른 문제다.
5.2 수소와 이산화탄소를 이용하는 반응은 초기 대사 가설의 모델이 된다
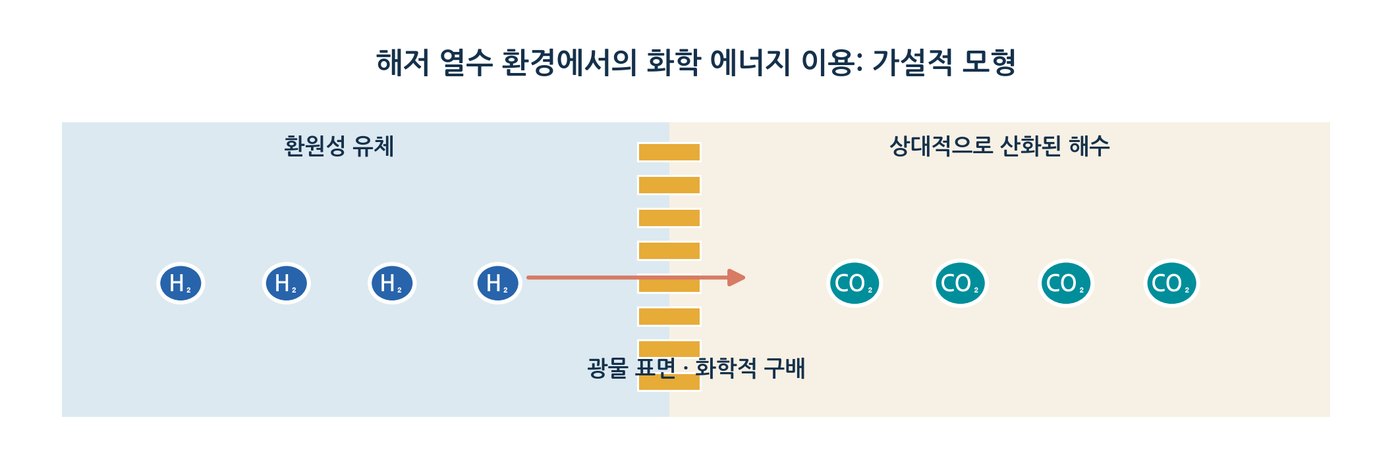
일부 메탄생성 고세균은 수소를 전자공여체로, 이산화탄소를 전자받개로 사용해 메탄을 만드는 대사를 수행한다. 이 반응은 4H₂ + CO₂ → CH₄ + 2H₂O로 나타낼 수 있다. 모든 고세균이 이 반응을 하는 것은 아니며 메탄생성은 고세균의 특정 계통에서 확인된다. 일부 미생물의 아세트산 생성 대사에서는 4H₂ + 2CO₂ → CH₃COOH + 2H₂O와 같이 표현되는 전체 반응이 이용된다. 두 반응은 단지 대표적인 화학량론식이며 실제 환경에서 얻는 자유에너지는 반응지수 Q와 온도에 따라 달라진다.
해저 열수계는 광물 촉매, 환원성 물질, pH 차이, 온도차와 화학적 구배 등을 제공할 수 있어 생명 기원의 한 후보 환경으로 연구된다. 고대 최초의 세포가 반드시 현대의 특정 메탄생성·아세트산생성 경로를 보유했다고 확인된 것은 아니다. “무기 연료를 사용했을 것”이라는 진술은 지질·생화학적 근거에 기반한 가설의 성격을 지닌다. [7]
5.3 화학삼투적 에너지 전환은 오늘날 생물 사이에 널리 공유된다
오늘날 많은 생물은 막 양쪽의 양성자 전기화학 퍼텐셜 차이를 이용해 ATP 합성을 구동한다. 양성자 구동력(proton-motive force)은 전하에 의한 막전위(Δψ)와 H⁺의 농도 차이에 기인한 pH 기울기를 포함한다. 이 원리는 대사 경로와 소기관의 구조가 달라도 널리 등장한다. 공통성은 오랜 진화 역사를 추론하는 단서가 되지만, 에너지 전환의 최초 형태를 단독으로 증명하지는 못한다.
계산·토의 | 산화·환원의 자유에너지
1.3에서 다룬 관계식 ΔG = ΔG°′ + RT ln Q를 떠올려 보자. 같은 화학 반응이라도 반응물과 생성물의 활성도 비 Q가 달라지면 실제 ΔG는 달라진다. 따라서 원시 환경의 대사 가능성을 평가하려면 화학식뿐 아니라 당시의 pH·온도·농도와 이용 가능한 전자받개까지 알아야 한다.
진핵세포는 몇 단계를 거쳐 더 단순한 전구체로부터 진화하였다
6.1 진핵세포의 기원에는 고세균 계통과 세균의 공생이 관여했다
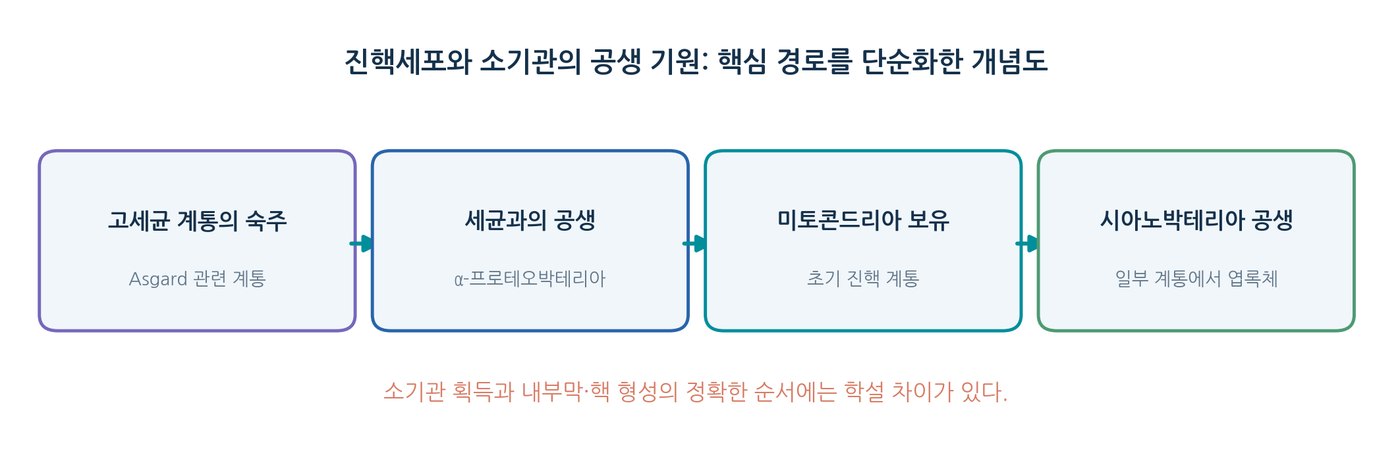
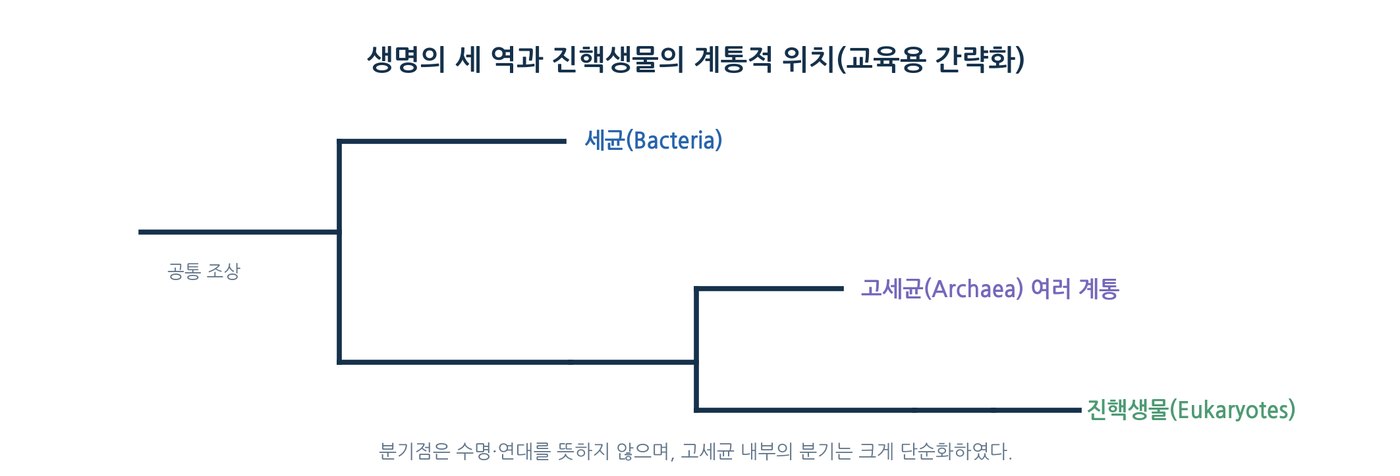
현대 분자계통학에서는 진핵생물이 고세균 계통, 특히 아스가르드(Asgard) 고세균과 가까운 진화적 연관성을 보인다고 해석한다. 미토콘드리아는 알파프로테오박테리아와 관련된 세균이 공생체로 통합되어 형성된 것으로 이해된다. 공생 기원은 다양한 단백질·rRNA·유전체의 계통 분석, 소기관의 유전 체계, 막 관련 특성 등으로 강하게 지지된다. 단, 현존하는 특정 아스가르드 고세균이 그대로 우리 조상 세포였다는 뜻은 아니다. [8][9]
6.2 공생의 증거는 구조와 분자 정보가 함께 제공한다
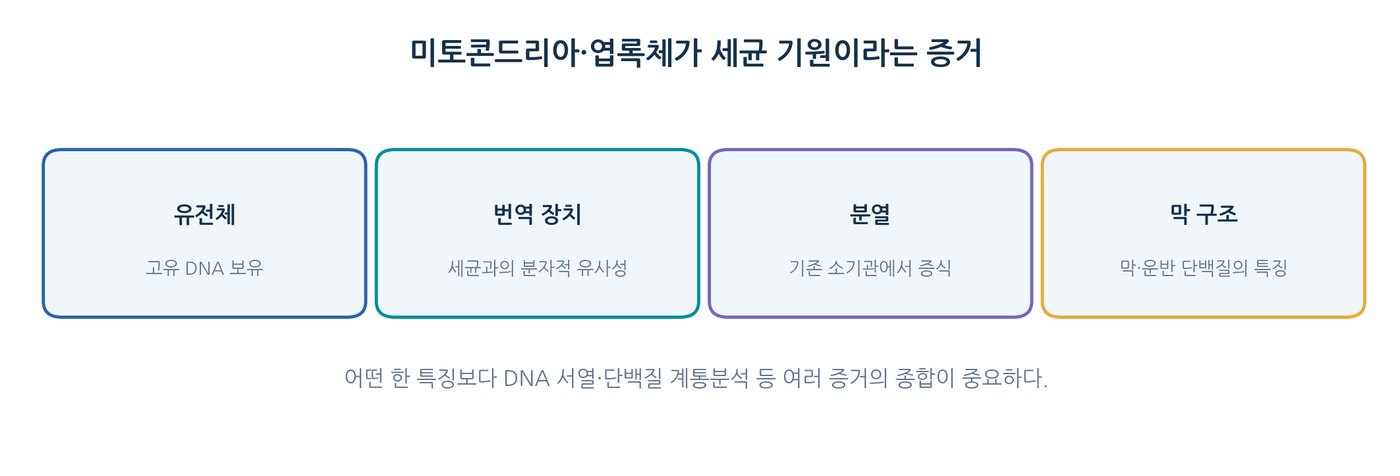
미토콘드리아와 엽록체는 각자의 유전체를 갖고 기존 소기관의 성장과 분열을 통해 증가하며, 그 리보솜·유전체·단백질은 여러 면에서 세균과 진화적 연관성을 보인다. 많은 소기관 단백질은 세포핵 유전체에서 암호화된 뒤 세포질에서 합성되어 수입된다. 이는 과거 공생체의 일부 유전자가 핵으로 이전되고 공생체와 숙주가 기능적으로 통합되었음을 설명한다. 고유 DNA는 흔히 원형이지만 생물군에 따라 선형 유전체 등 예외가 있으므로 모든 소기관 DNA를 원형이라고 단정하지 않는다. [10]
6.3 엽록체와 진핵세포 내부 구조의 기원은 구별해 설명한다
광합성 색소체(엽록체 등)는 시아노박테리아 계통의 생물이 초기 진핵세포 안으로 공생하여 형성된 1차 공생의 기원을 갖는다. 이후 일부 계통에서는 광합성 진핵생물을 다시 받아들이는 2차 공생이 일어났다. 그러나 핵막, 세포골격, 내막계의 발달 시점 및 미토콘드리아가 획득된 정확한 순서는 현재도 경쟁 모형이 존재한다. 2026년 발표된 분자시계·유전자 중복 연구는 일부 복잡한 세포 기능이 미토콘드리아 획득보다 먼저 발달했을 가능성을 제시했지만, 세부 연대 및 순서에 대해서는 독립적 검증이 필요하다. [9][11]
분자 해부학이 진화적 유연관계를 밝혀준다
7.1 공통된 분자적 특징은 공통 조상을 추론하는 자료가 된다
모든 세포 생물에서 DNA·RNA·단백질과 리보솜을 사용하는 기본 체계가 발견된다. 코돈 해독과 단백질 번역 기작의 높은 공통성, 보존된 rRNA와 핵심 효소의 서열은 공통 진화 역사를 뒷받침한다. 유전체와 단백질의 서열·구조·기능을 비교하여 계통관계를 추론하는 접근을 분자계통학 또는 분자진화 연구라고 한다. ‘분자 해부학’이라는 표현은 이렇게 공유되는 분자 구조와 기능의 흔적을 읽는다는 의미로 이해할 수 있다.
7.2 유전자의 상동성과 서열 유사도는 같은 말이 아니다
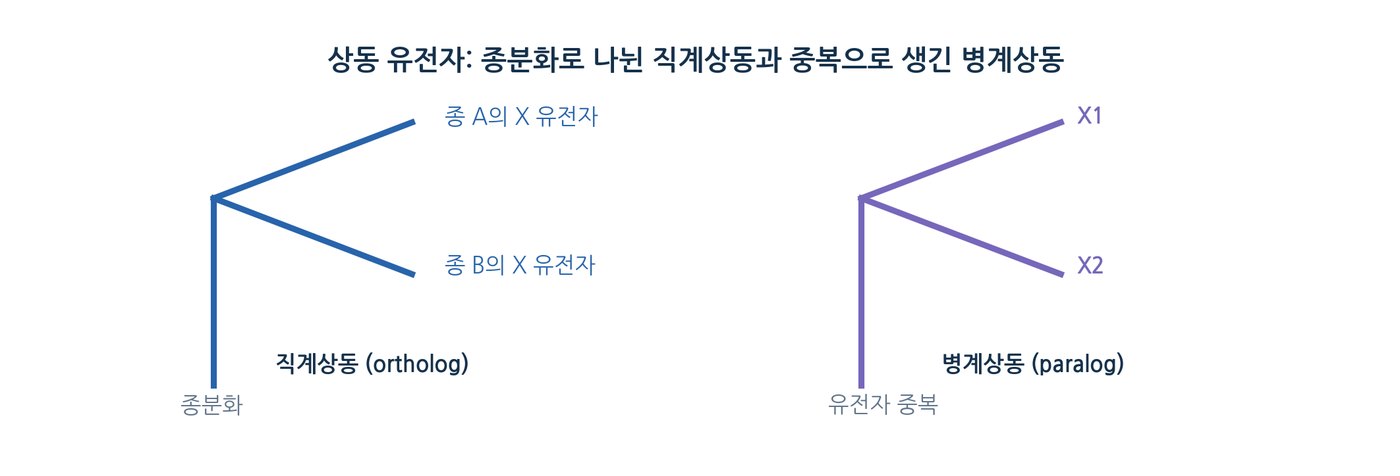
상동성(homology)은 두 서열이 공통 조상에서 유래했다는 진화적 관계를 의미한다. 서열 일치율은 그 관계를 뒷받침하는 정량적 단서이지만 “상동성 90%”처럼 백분율로 나타내는 것은 엄밀하지 않다. 직계상동(ortholog)은 종분화로 갈라진 유전자, 병계상동(paralog)은 유전자 중복으로 갈라진 유전자를 뜻한다. 유사도가 높아도 기능은 달라질 수 있고, 짧은 서열의 우연한 일치는 공통 조상 증거로 충분하지 않을 수 있다. [12]
7.3 서열 정렬과 계통수는 통계적 가설을 제시한다
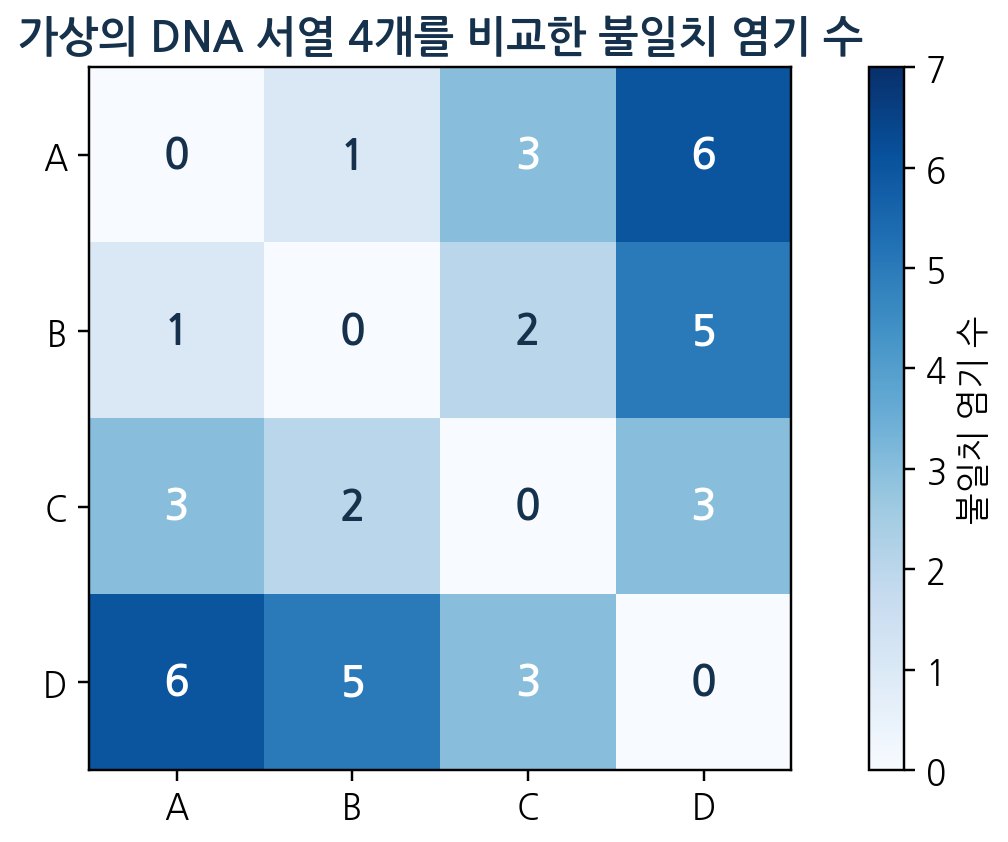
서열 정렬(sequence alignment)은 비교할 염기 또는 아미노산의 대응 위치를 맞추는 작업이다. 정렬한 위치에서 서로 다른 염기의 수를 셀 수 있으나, 실제 진화 분석에서는 치환의 중복·삽입·결실·진화속도 차이 등을 고려해야 한다. 계통수의 노드는 공통 조상을, 가지는 진화 계통을 표현하며 가지 길이는 사용한 분석법에 따라 변이 수 또는 시간을 뜻할 수 있다. 서로 다른 유전자들이 다른 계통수를 만드는 이유 중 하나는 수평적 유전자 이동이다.
아래의 네 서열은 교재가 인위적으로 만든 12염기짜리 가상 자료다. DNA에 삽입·결실은 없다고 가정하고 같은 위치를 비교하면 A–B는 1개, A–C는 3개, A–D는 6개가 다르다. 이 자료만으로 실제 생물종의 계통을 확정할 수는 없으며 계통 추론에서는 더 많은 서열과 적절한 모델이 필요하다.
7.4 보존된 단백질 도메인은 생화학적 기능을 추정하게 한다
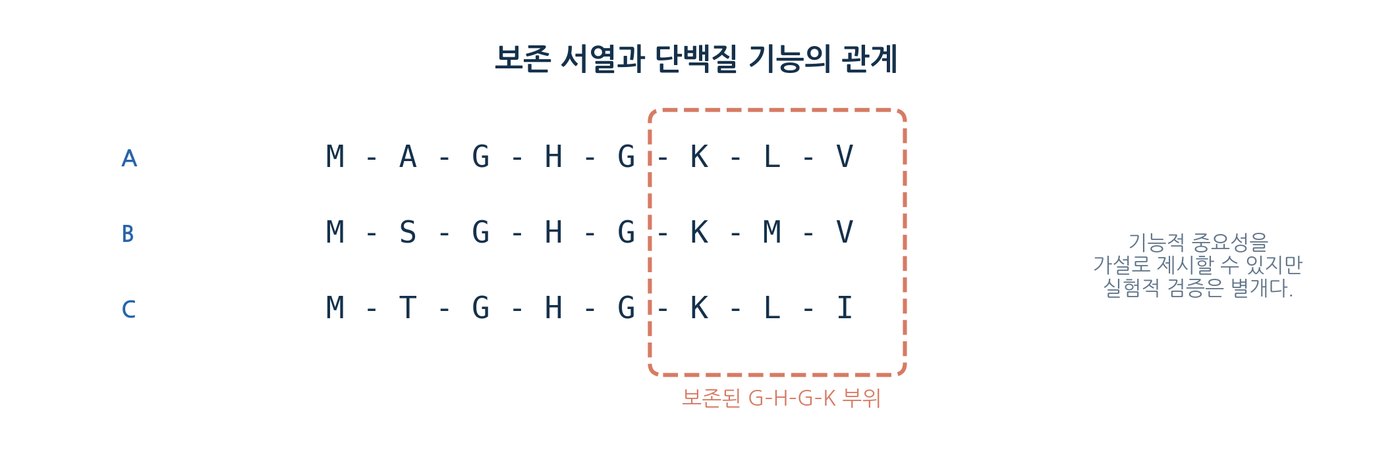
효소 활성 부위, ATP 결합 모티프, 단백질 접힘의 핵심 잔기 등은 진화 과정에서도 강하게 보존될 수 있다. 단백질의 입체구조와 활성 부위가 비슷하면 비슷한 기능을 갖는다는 가설을 세울 수 있다. 다만 단백질 서열만으로 모든 활성·기질 특이성·세포내 위치를 확정할 수 없으므로 생화학적 활성 측정과 유전자 조작 실험으로 검증해야 한다.
기능유전체학은 특정한 세포의 활동에 유전자를 연결할 수 있음을 보여준다
8.1 유전체를 읽는 것과 기능을 확인하는 것은 다르다
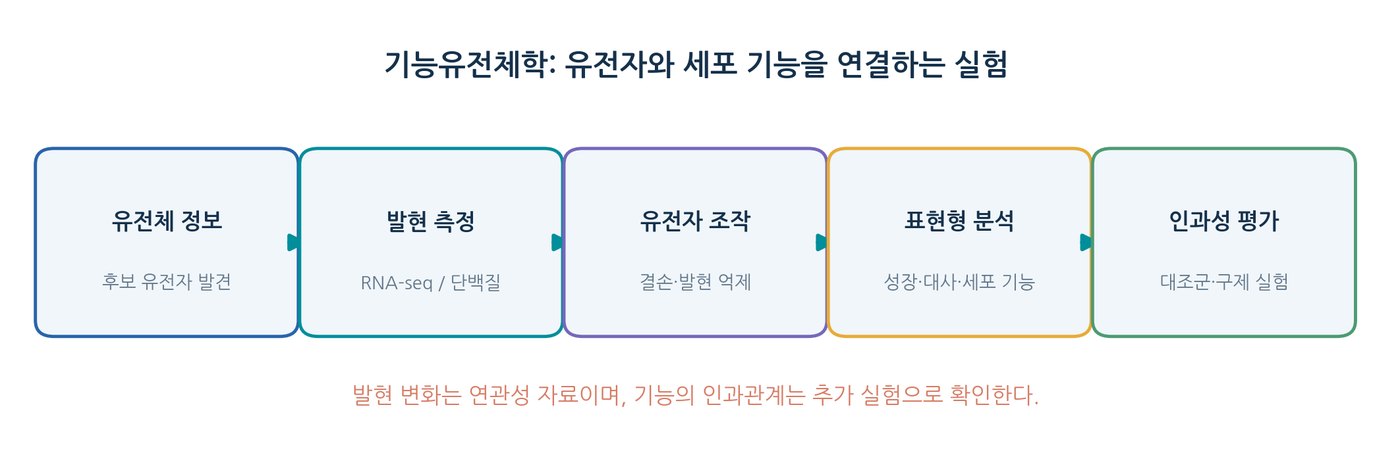
유전체학은 DNA의 전체 구성을 조사하고, 기능유전체학(functional genomics)은 그 정보가 실제 세포 활동에서 어떻게 사용되는지를 검증한다. RNA 염기서열 분석(RNA-seq)은 전사된 RNA의 종류와 상대적 양을 측정하는 데 이용되고, 단백질체학은 단백질의 양과 변형 상태를 조사한다. 또한 유전자 결손(knockout), 발현 억제(knockdown), CRISPR 기반 조작을 이용해 특정 유전자가 기능에 미치는 영향을 분석할 수 있다. ENCODE 같은 국제 연구는 세포 유형과 조건별 유전체 조절 요소를 체계적으로 조사한다. [13][14]
8.2 유전자 발현 변화는 단백질 기능 변화와 동일하지 않다
RNA 양이 증가하더라도 단백질의 합성·분해 속도, 번역 후 변형, 세포 내 위치, 기질 농도에 따라 실제 효소 활성이 달라질 수 있다. 따라서 발현 분석은 어떤 유전자가 특정 조건과 연관되는지를 보여주는 출발점이지만, 원인인지 결과인지는 추가 실험으로 구분해야 한다. 올바른 대조군, 생물학적 반복, 시료 채취 조건의 통일, 독립적 실험 검증이 필수적이다.
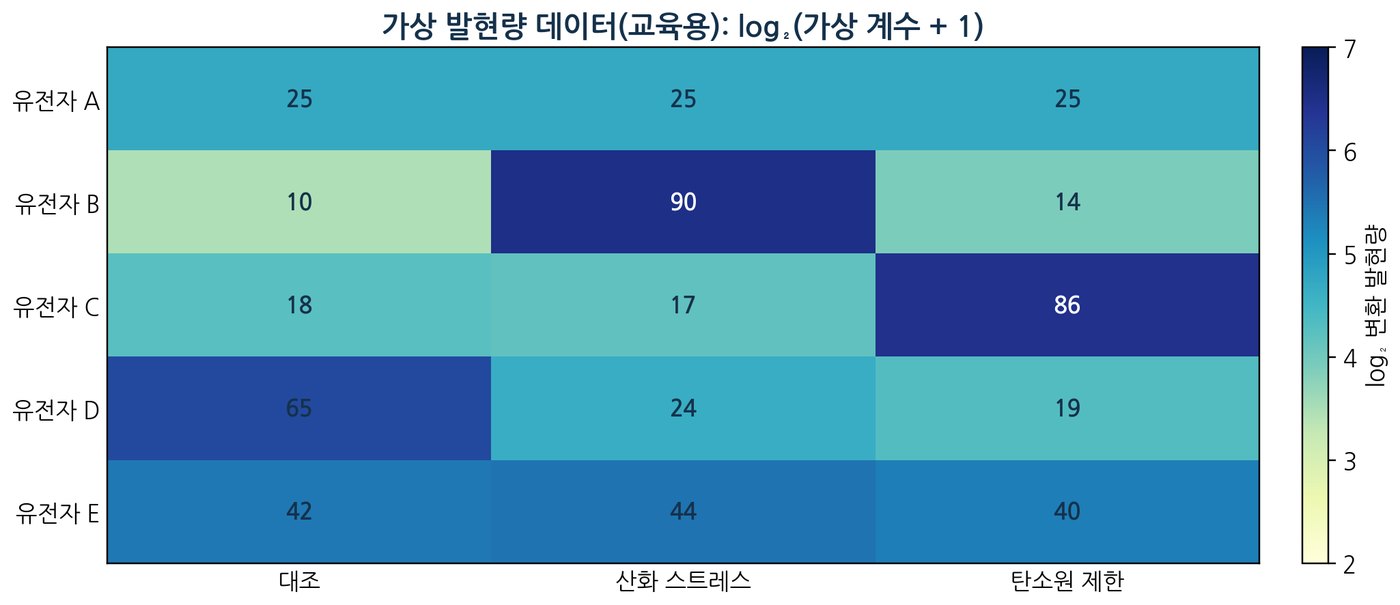
아래 가상 발현량 표는 각 조건에서 얻은 가상의 양의 계수다. 실측 RNA-seq 데이터가 아니며 유전자 길이·시퀀싱 깊이 차이에 대한 실제 정규화가 수행되지 않았다. 숫자는 데이터 해석 훈련에만 사용한다.
8.3 예측된 기능은 교란 실험으로 검증할 수 있다
예를 들어 유전자 B의 RNA 양이 산화 스트레스에서 높아졌다면 B가 산화 스트레스 반응과 관련될 수 있다는 가설을 세운다. 이후 B 유전자를 불활성화한 세포와 대조군을 같은 조건에서 비교하고, B 유전자를 다시 도입하는 구제(rescue) 실험으로 표현형이 회복되는지 검증할 수 있다. 다만 유전자 B가 직접적인 항산화 효소인지, 상위 조절자인지, 단순한 스트레스 반응의 결과인지는 이러한 데이터만으로 확정하지 않는다.
유전체 비교는 인류 생물학과 의학에서 그 중요성이 점차 증가하고 있다
9.1 종 사이의 유전체 비교는 보존 기능과 인간 유전자의 의미를 밝힌다
사람과 생쥐·초파리·효모·세균 등의 유전체를 비교하면 오랫동안 보존된 유전자, 새로 중복·소실된 유전자, 발현을 조절하는 비암호화 DNA 부위를 탐색할 수 있다. 특정 사람 유전자와 직계상동인 유전자가 모델 생물에서 어떤 기능을 하는지 조사하면 사람의 세포·질환 연구를 위한 초기 가설을 세울 수 있다. 다만 모델 생물에서 같은 유전자가 발견되었다는 사실만으로 모든 조직과 질환에서 기능이 동일하다고 단정할 수 없다.
9.2 의학 유전체 연구에서는 ‘변이가 있다’와 ‘질환의 원인이다’를 구분한다
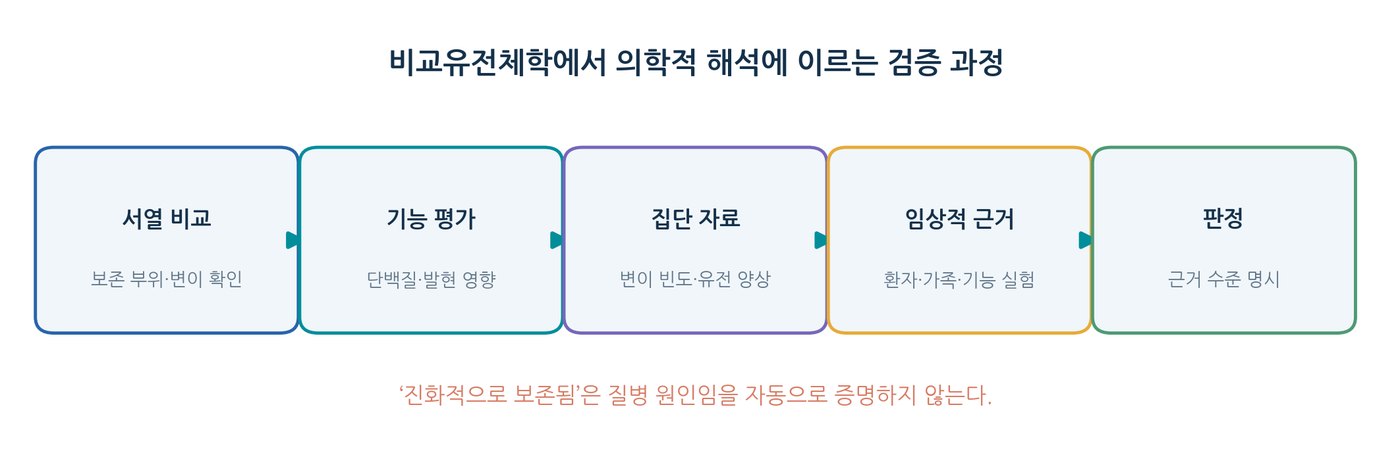
개인 유전체에서 발견되는 변이는 대부분 질병을 유발하지 않는다. 어떤 변이가 병원성인지 판단하려면 집단 빈도, 환자와 가족의 유전 양상, 단백질 기능 실험, 임상 표현형, 다른 연구의 재현성을 함께 분석해야 한다. 보존된 아미노산이 변했다는 사실은 기능적 중요성을 추론하는 단서이지만 단독으로 질병 원인을 증명하는 기준은 아니다. 복잡한 질환은 다수의 유전자와 환경 요인이 함께 영향을 주며, 유전 정보의 활용에는 개인정보 보호와 공정한 해석도 필요하다. [15]
9.3 유전체 비교는 맞춤형 의학과 진화 연구를 연결한다
미생물의 내성 관련 유전자 추적, 암세포의 유전체 변화 분석, 희귀 유전질환의 후보 변이 해석 등은 비교유전체학의 응용 사례다. 특히 DNA 서열 비교만으로 모든 치료법이 결정되는 것은 아니며, 발현·단백질 기능·환경·임상 정보가 함께 해석되어야 한다. 진화적 보존은 기능을 이해하게 하고, 기능 실험은 유전체 서열의 의미를 다시 정교하게 만든다.
| 변화 원리 | 분자 수준 현상 | 집단·진화 수준 결과 |
|---|---|---|
| 돌연변이 | 염기의 치환·삽입·결실 | 새로운 대립유전자 형성 |
| 재조합 | 상동 염색체 간 DNA 교환 등 | 대립유전자 조합의 다양화 |
| 수평적 유전자 이동 | 개체·계통 사이 DNA 전달 | 새 유전자와 형질의 도입 |
| 자연선택 | 표현형과 적합도 차이 | 비중립 변이의 빈도 변화 |
| 유전적 표류 | 우연한 표본 추출 효과 | 특히 작은 집단에서 빈도 변화 |
| 핵심 개념 | 돌연변이 자체가 미래에 유리해질 것을 ‘예측’하며 발생하지 않는다. 유전적 변이, 유전적 부동, 자연선택, 유전자 흐름은 구분하여 설명해야 한다. |
|---|
| 실험·관찰 | 직접 지지하는 주장 | 이것만으로 지지하지 않는 주장 |
|---|---|---|
| 유기분자 합성 | 비생물 조건에서 유기분자 형성이 가능 | 최초 생명체가 실험과 같은 경로에서 출현 |
| 막 소포의 자발적 형성 | 특정 분자가 구획을 만들 수 있음 | 세포의 증식과 유전이 완성됨 |
| 리보자임 활성 | 일부 RNA가 화학 반응을 촉진 | RNA 세계가 실제 초기 지구에서 존재했음 |
| 분자 | 유전정보 저장 | 촉매·구조 기능 | 초기 진화에서의 쟁점 |
|---|---|---|---|
| DNA | 현대 세포에서 주요 저장체 | 촉매 역할은 제한적 | 안정적 DNA 저장체의 획득 순서 |
| RNA | 일부 바이러스의 유전체·현대 세포 정보 전달 | 리보자임·rRNA의 촉매 활성 | 자연 조건에서의 합성·복제·안정성 |
| 단백질 | 일반적으로 서열 복제 주형이 아님 | 대부분의 현대 효소 | 유전정보 기반 번역계의 출현 |
| 사건 | 대표적 연대(근삿값) | 자료 해석상의 유의점 |
|---|---|---|
| 지구 형성 | 약 45.4억 년 전 | 방사성 동위원소 연대 측정 기반 |
| LUCA | 한 연구 약 42억 년 전 | 계통·분자시계 모형에 따라 달라짐 |
| 고대 미생물 흔적 | 약 35억 년 전 | 최초 출현 연대를 뜻하지 않음 |
| 대산소화 사건 | 약 24억 년 전 전후 | 산소 생성 광합성의 개시와 동일 시점 아님 |
| 초기 진핵생물 | 대략 18억 년 전 및 이후 | 화석·분자시계에 따라 견해 차이 |
| 주제 | 강하게 뒷받침되는 설명 | 세부 연구 쟁점 |
|---|---|---|
| 진핵 숙주 계통 | 고세균·아스가르드 계통과 진화적 연관 | 정확한 가지 위치와 조상 세포의 특성 |
| 미토콘드리아 | 세균과의 내공생 기원 | 획득 시점 및 세포 복잡화의 선후 |
| 광합성 색소체 | 시아노박테리아 유래 1차 내공생 | 2차·추가 공생의 복잡한 계통 역사 |
| 핵·내막계 | 진핵 진화 동안 새로운 구획 구조 형성 | 각 요소가 생겨난 상세한 단계 |
| 가상 표본 | 정렬 DNA 서열(5′→3′) | A와 다른 위치 수 |
|---|---|---|
| A | ATGCTACGTTAA | 0 |
| B | ATGCTACGTTAG | 1 |
| C | ATGATACATTAG | 3 |
| D | TTGATCCACTAG | 6 |
| 유전자 | 대조 | 산화 스트레스 | 탄소원 제한 |
|---|---|---|---|
| A | 25 | 25 | 25 |
| B | 10 | 90 | 14 |
| C | 18 | 17 | 86 |
| D | 65 | 24 | 19 |
| E | 42 | 44 | 40 |